Neurosci Biobehav Rev. 2011 年1 月;35(3):939-55。doi:10.1016/j.neubiorev.2010.10.014。2010 年 11 月 2 日在线发表。
- 1Bernard B. Brodie意大利加利福尼亚州09042 Monserrato,Cittadella Universitaria,卡利亚里大学神经科学系。 [email protected]
抽象
当注射到中枢神经系统时,催产素是阴茎勃起的有效诱导剂。 在雄性大鼠中,催产素的前勃起效应最敏感的脑区是下丘脑的室旁核。 该核和周围区域包含所有催产素神经元的细胞体,其突出到下丘脑外区域和脊髓。 该综述显示催产素在注射到这些区域中的一些区域时也诱导阴茎勃起(例如,腹侧被盖区域,海马腹侧下棘,杏仁核后内侧皮质核和胸腰椎脊髓)。 显微注射研究结合脑内微透析和双免疫荧光研究表明,这些区域的催产素直接或间接(主要通过谷氨酸)中脑边缘多巴胺能神经元激活。 在伏隔核中释放的多巴胺反过来激活神经通路,导致室旁核中的下丘脑多巴胺能神经元的激活。 这不仅激活投射到脊髓的阴性神经元神经元并介导阴茎勃起,还激活那些投射到上述下丘脑外区域的神经元,直接或间接地(通过谷氨酸)调节控制动机和奖励的中脑边缘多巴胺能神经元的活性。 这些神经通路可以构成一个复杂的假设循环,它不仅在性活动的完成阶段(勃起功能和交配)中起作用,而且在性行为的预期阶段的动机和奖励方面起作用。
1.Introduction
阴茎勃起是雄性动物的一种性反应,在包括人类在内的哺乳动物的繁殖中起着关键作用,而且在与繁殖无关的其他情况下也能观察到阴茎勃起。根据阴茎勃起发生的背景,不同的中枢和外周神经和/或体液机制参与其调节(参见 Meisel 和 Sachs,1994;Argiolas 和 Melis,1995、2004、2005;Sachs,2000、2007;McKenna,2000;Giuliano 和 Rampin,2000、2004;Andersson,2001;Melis 和 Argiolas,1995a、2003;Hull 等,2002)。在控制阴茎勃起的中枢神经递质和神经肽中,最著名的有多巴胺、血清素、兴奋性氨基酸、一氧化氮、促肾上腺皮质激素、催产素和阿片肽。它们可以通过作用于多个脑区来促进或抑制阴茎勃起,例如内侧视前区、下丘脑室旁核、腹侧被盖区、海马、杏仁核、终纹床核、伏隔核、延髓和脊髓(表1)(参见Meisel和Sachs,1994;Witt和Insel,1994;Stancampiano等人,1994;Argiolas和Melis,1995,2005;Argiolas,1999;Bancila等人,2002;Giuliano和Rampin,2000;McKenna,2000;Andersson,2001;Hull等人,2002;Coolen等人)。 2004)。
催产素是一种神经垂体肽,以其在哺乳期和分娩中的激素作用而闻名,存在于雌性和雄性中,不仅存在于位于下丘脑的室旁和视上核的细胞体投射到神经垂体的神经元中,而且还存在于神经元投射中。从室旁核和周围结构到下丘脑外区域(即隔膜,腹侧被盖区,海马,杏仁核,延髓和脊髓)。 这些神经元被认为涉及许多中心功能,例如记忆,学习,附属和社会性行为,包括阴茎勃起和交配行为(参见Buijs,1978; Sofroniew,1983; Argiolas和Gessa,1991; Pedersen等1992; Carter,1992; Wagner和Clemens,1993; Ivell和Russel,1995; Carter等,1997; Tang等,1998; Veronneau-Longueville等,1999)。 实际上,催产素促进小鼠,大鼠,兔和猴的勃起功能和男性性行为(参见Argiolas和Gessa,1991; Carter,1992; Pedersen等,1992; Argiolas和Melis,1995,2004; Argiolas,1999)。 这种情况也可能发生在人类身上,因为血浆催产素会因性刺激而增加,特别是在射精时(Carmichael等,1987;墨菲等,1987)以及乳房和生殖器的操纵,这通常发生在性行为中交往(Tindall,1974)。
催产素对男性性行为的促进作用首先通过静脉注射催产素降低第一次射精的潜伏期和延迟与接受性雌性配对的雄性兔的性衰竭的能力来证明(Melin和Kihlstrom,1963)。 然而,催产素的性作用仅在八十年代才得到明确认可。 然后发现以纳克量中心给予的催产素能够诱导阴茎勃起(Argiolas等,1985,1986)并改善雄性大鼠的交配行为(Arletti等,1985),并增加雌性大鼠的脊柱前凸(Arletti)和Bertolini,1985; Caldwell等,1986),显然通过作用于子宫型催产素受体(参见Argiolas和Melis,1995,2004; Argiolas,1999; Melis和Argiolas,2003;及其中的参考文献)。 催产素不仅可以改善性功能雄性大鼠(Arletti等,1985)的性行为,还可以改善老年雄性大鼠(Arletti等,1990)和雄性松鼠(Winslow和Insel)中的显性而非下属的性行为。 ,1991)。
催产素的促勃起作用依赖于睾酮,因为垂体切除术和去势会消除这种作用,而补充睾酮或其代谢产物雌二醇和5'-二氢睾酮则可恢复这种作用(Melis等,1994a)。催产素诱导阴茎勃起最敏感的脑区是下丘脑室旁核(Melis等,1986),所有下丘脑外催产素能投射均起源于此(见上文)。研究发现,注射低至3 pmol的催产素即可诱导阴茎勃起(以及打哈欠)(见下文2.1节)。双侧注射催产素至海马CA1区可诱发阴茎勃起,但注射至背侧下托(见下文2.3节)、侧隔核、尾状核、内侧视前区、下丘脑腹内侧核和视上核则无此效果(Melis等,1986)。至于催产素在室旁核中诱导性反应的机制,大量研究表明催产素激活了自身的神经元。与此假设一致,性互动会增加 FOS,即投射到脊髓的室旁核催产素能神经元中立即早期基因 c-fos 的基因产物,这些神经元参与控制阴茎勃起(参见 Witt 和 Insel,1994 年及其参考文献),并且性功能障碍(例如,成年雄性大鼠无法与卵巢切除的、雌激素-孕激素预处理的接受雌性大鼠交配)与雄性大鼠下丘脑室旁核中催产素 mRNA 水平低有关(Arletti 等人,1997 年)。
目前尚不清楚催产素是影响性行为的预期阶段还是完成阶段。由于催产素能诱导阴茎勃起,且其对交配行为的主要影响是缩短雄性大鼠的射精后间隔(Arletti等人,1985),因此可以合理推测该肽能改善性功能。然而,由于催产素还能增加社会性互动(参见 Pedersen 等人,1992;Carter 等人,1997;Ivell 和 Russel,1995),而催产素受体拮抗剂能阻止非接触性勃起(Melis 等人,1999a),非接触性勃起被认为是性唤起的指标(参见 Sachs,1997、2000、2007;Melis 等人,1998、1999b 及其参考文献),因此不能排除催产素在性唤起和性动机中可能发挥的作用。
本综述总结了近期研究的已发表和未发表的结果,这些研究表明,催产素不仅在注射到下丘脑室旁核时能诱发阴茎勃起,而且在其他下丘脑外脑区,如腹侧被盖区(Melis 等,2007,2009a;Succu 等,2008)、海马腹侧下托和杏仁核后核(Melis 等,2009b,2010)也能诱发阴茎勃起。这些脑区是边缘系统的重要组成部分,被认为在动机和奖赏过程中发挥着关键作用。这些研究表明,催产素参与了包括多巴胺和谷氨酸等其他神经递质在内的神经回路,以及除室旁核以外的其他脑区,例如腹侧被盖区、伏隔核、海马体和一些尚未确定的区域。这些回路可能介导中脑边缘系统和不确定-下丘脑多巴胺能系统之间的相互作用,并且不仅在男性性行为的完成阶段(例如阴茎勃起和交配)发挥作用,而且在性动机和性唤起中也发挥作用,从而为解释性活动的动机和奖赏特性提供了神经基础。
2。 催产素通过作用于不同的大脑区域来影响阴茎勃起
2.1。 下丘脑的室旁核
如上所述,下丘脑的室旁核很快被确定为对催产素的前勃起效应最敏感的脑区。 当单侧注射到该细胞核中时,发现催产素在低至3 ng(3 pmol)的剂量下有活性(Melis等,1986)。 结构 - 活性关系研究表明,催产素诱导的阴茎勃起是由子宫型催产素受体介导的,与Ca2 +流入投射到下丘脑外脑区域的催产素神经元细胞体和一氧化氮合成酶的激活有关。 反过来,一氧化氮通过充当细胞内信使而具有尚未知的机制(不涉及鸟苷酸环化酶),导致催产素神经元向脊髓和下丘脑外区域的激活,诱导阴茎勃起(图1)(见下面是Argiolas和Melis,1995,2004,2005及其中的参考文献)。 催产素激活其自身神经元的能力
图.1。 (MISSING)催产素神经元的示意图,其起源于下丘脑的室旁核并且突出到下丘脑外的大脑区域,例如脊髓,VTA,海马,杏仁核等。这些神经元的激活通过多巴胺,兴奋性氨基酸,催产素本身,己二酰类似物肽和VGF衍生肽导致阴茎勃起,其可通过刺激GABA能,阿片样物质和大麻素CB1受体而减少和/或消除。 催产素神经元的激活继发于这些神经元中存在的一氧化氮合酶的激活。 事实上,通过刺激多巴胺,兴奋性氨基酸或催产素受体或外源性一氧化氮形成的内源性一氧化氮,如源自直接进入室旁核的一氧化氮供体,通过尚未明确的机制激活催产素神经元,显然与其无关。刺激鸟苷酸环化酶。 这反过来导致脊髓和下丘脑外脑区的催产素释放。 关于催产素在这些区域中释放时诱导阴茎勃起的机制的一些细节,例如VTA,腹侧下颌骨和杏仁核在相应的脑区部分中描述。 在这里,催产素作用于其自身的受体并增加NO的产生,这导致PVN中发现的阴茎勃起。 然而,与PVN不同,在尾部VTA NO中激活鸟苷酸环化酶。 这导致cGMP浓度增加,导致中脑边缘多巴胺能神经元的激活和阴茎勃起。 在VS NO中激活投射到海马外区域的谷氨酸能神经元,包括VTA。 VTA中的谷氨酸依次激活催产素中发现的中脑边缘多巴胺能神经元。 当在生理环境中发生阴茎勃起时,即当雄性大鼠被放置在难以接近的接受性雌性(例如,非接触性勃起)的存在下或在交配期间时,类似于上述机制的机制也可能起作用。
室旁核中存在催产素的观点得到了以下研究的支持:(1) 下丘脑室旁核中存在催产素受体(Freund-Mercier 等,1987;Freund-Mercier 和 Stoeckel,1995);(2) 催产素在体外和体内均能促进自身释放(Freund-Mercier 和 Richard,1981,1984;Moos 等,1984);(3) 催产素通过作用于室旁核来兴奋自身神经元(Yamashita 等,1987)。此外,在下丘脑室旁核和视上核中也发现了与大细胞催产素能神经元胞体相连的催产素能突触(Theodosis,1985)。最后,通过电解或化学兴奋性毒性损伤室旁核,破坏中枢催产素能神经元,导致中枢神经系统和脊髓中的催产素含量完全耗竭,不仅消除了催产素的促勃起作用,而且损害了药物诱导的阴茎勃起和非接触性勃起(见下文以及Argiolas等人,1987a,b;Liu等人,1997及其参考文献)。使用强效且选择性的催产素受体拮抗剂,也能获得与室旁核损伤类似的结果。事实上,将这些化合物以纳克级剂量注射到室旁核中,可完全阻止催产素诱导的阴茎勃起;而当注射到侧脑室时,不仅能阻止催产素本身诱导的阴茎勃起,还能阻止药物诱导的阴茎勃起(参见下文第3节以及Argiolas和Melis,1995、2004、2005及其参考文献)和非接触性勃起(Melis等,1999a),并且还能极其有效地抑制性成熟雄性大鼠的交配行为(Argiolas等,1988)。此外,性行为会增加FOS的表达,FOS是投射到脊髓的室旁核催产素能神经元中即刻早期基因c-fos的基因产物,这些神经元参与阴茎勃起的控制(参见Witt和Insel,1994及其参考文献)。最后,性功能障碍(例如,成年雄性大鼠无法与雌激素-孕激素预处理的接受雌性大鼠交配)在雄性大鼠中也与下丘脑室旁核中催产素 mRNA 和一氧化氮合酶水平低有关(Benelli 等人,1995;Arletti 等人,1997)(有关这些研究的详细综述,请参见 Argiolas,1999;Argiolas 和 Melis,2004,2005)。
2.2。 腹侧被盖区
腹侧被盖区是近期才被发现的脑区,催产素在该区域可诱导阴茎勃起。该区域包含起源于室旁核的催产素能神经末梢和催产素受体(Freund-Mercier等,1987;Vaccari等,1998)。更确切地说,研究发现,单侧注射催产素至腹侧被盖区尾侧(而非头侧)可诱导阴茎勃起,且呈剂量依赖性(Melis等,2007)。其有效剂量高于注射至室旁核所需的剂量,与注射至海马腹侧下托或杏仁核后内侧皮质核诱导阴茎勃起所需的剂量相似(见下文)。显然,促勃起作用是通过激活投射到伏隔核外壳的中脑边缘多巴胺能神经元介导的,而伏隔核外壳又激活投射到不确定下丘脑多巴胺能神经元的未知神经通路,这些神经元会影响介导阴茎勃起的室旁催产素能神经元(Melis 等人,2007,2009a)。
关于催产素激活腹侧被盖区多巴胺能神经传递的机制,现有数据表明,催产素刺激位于中脑边缘多巴胺能神经元胞体内的催产素受体。这会增加多巴胺能神经元胞体内的Ca2+内流,从而激活一氧化氮合酶(Succu等人,2008)。与室旁核(见下文第3节)不同,一氧化氮反过来激活鸟苷酸环化酶,从而增加环磷酸鸟苷(cGMP)的浓度。根据这一机制,在注射催产素之前,将强效催产素拮抗剂 d(CH2)5Tyr(Me)2-Orn8-血管加压素或强效神经元一氧化氮合酶抑制剂 S-甲基硫代-l-瓜氨酸注射到尾侧腹被盖区,可以消除催产素引起的阴茎勃起和伏隔核壳部细胞外多巴胺浓度的增加。此外,8-溴环鸟苷酸(8-bromo-cyclic GMP)是一种活性磷酸二酯酶抗性环鸟苷酸类似物,当注射到尾腹被盖区时,可诱导阴茎勃起,并增加伏隔核壳部的细胞外多巴胺浓度,这与向尾腹被盖区注射催产素的效果相同(Succu 等人,2008;Melis 等人,2009a)(另见图 2)。
与此机制一致,强效多巴胺D2受体拮抗剂氟哌啶醇注射到伏隔核壳部可降低由注射到腹侧被盖区的催产素诱导的阴茎勃起(Melis等,2007)。上述机制也得到了双重免疫荧光研究的支持,该研究表明催产素纤维会压迫尾侧腹侧被盖区多巴胺能神经元的胞体,这些神经元此前已用逆行示踪剂Fluorogold标记,该示踪剂已注射到伏隔核壳部(Melis等,2007;Succu等,2008)。伏隔核中多巴胺能神经元和多巴胺受体的激活,反过来又会激活尚未明确的神经通路,这些通路刺激下丘脑不确定核的多巴胺能神经元,使其在室旁核释放多巴胺,从而激活投射到脊髓并介导阴茎勃起的催产素能神经元(见上文及Melis等人,2007;Succu等人,2007,2008)。事实上,向尾侧腹被盖区注射足以诱导阴茎勃起的催产素,不仅增加了伏隔核透析液中的细胞外多巴胺浓度,也增加了室旁核透析液中的细胞外多巴胺浓度(Succu等人,2007)。
2.3。 海马
海马CA1区是另一个富含催产素能纤维和受体的脑区,早期研究已证实,注射催产素可诱发阴茎勃起(参见Bujis,1978;Sofroniew,1983)。然而,与室旁核不同的是,催产素在CA1区只有在双侧注射且剂量高于室旁核有效剂量时才能诱发阴茎勃起(Melis等,1986;Chen等,1992)。早期研究发现,向下托注射催产素无效。然而,近期更为精细的微量注射研究发现,在腹侧下托的一个区域注射催产素可以剂量依赖性地诱发阴茎勃起(Melis等,2009b)。在与单侧注射后腹侧被盖区(VTA)有效剂量相似的剂量下,向该脑区注射催产素可观察到促勃起作用(Melis等人,2007),这与室旁核(PVN)中观察到的促勃起作用相似。显然,向腹侧下托注射催产素可通过激活含有硝酸合成酶的神经元中的催产素受体来诱导阴茎勃起,从而导致一氧化氮生成增加。一氧化氮反过来作为细胞间信使激活谷氨酸神经传递,从而导致阴茎勃起,这可能是通过从腹侧下托到海马外脑区的神经(谷氨酸能)传出投射来调节中脑边缘多巴胺能神经元(例如,腹侧被盖区、前额皮质、室旁核)的活动(见下文和 Melis,2007,2009b;Succu 等人,2008)。
这种作用机制得到脑内微透析实验的支持,该实验表明催产素以诱导阴茎勃起的剂量注入腹侧下托,增加了腹侧下腔透析液中的一氧化氮产生和细胞外谷氨酸浓度(Melis等。 ,2010)和伏隔核中的细胞外多巴胺(Melis等,2007)。 这些反应不仅受到催产素受体拮抗剂d(CH2)5Tyr(Me)2-Orn8-血管紧张素的拮抗作用,而且还被神经元型一氧化氮合酶抑制剂S-甲基 - 硫代 - 瓜氨酸和一氧化氮清除剂血红蛋白所拮抗。在催产素前几分钟进入腹侧下丘(Melis等,2010)。
此外,与此作用机制相符,向腹侧下托注射NMDA激活谷氨酸能神经传递可诱发阴茎勃起(Melis等,2010)。目前尚不清楚腹侧下托传出投射的表型,这些投射可激活中脑边缘多巴胺能神经元并增加伏隔核细胞外多巴胺水平。然而,由于注射到腹侧下托的催产素引起的阴茎勃起与腹侧被盖区透析液中细胞外谷氨酸的增加同时发生,而不是与伏隔核的细胞外谷氨酸的增加同时发生,并且被注射到腹侧被盖区而不是伏隔核的强效非竞争性兴奋性氨基酸受体拮抗剂 (+)MK-801 (Woodruff 等,1987) 所拮抗(见图 2 和 Melis 等,2009b),因此这些投射可能导致腹侧被盖区谷氨酸能神经传递的激活,进而激活投射到伏隔核的中脑边缘多巴胺能神经元。目前尚不清楚,在腹侧下托注射催产素后,腹侧被盖区谷氨酸浓度的升高是由下托神经元释放,还是由其他脑区(例如前额叶皮层)的神经元释放。然而,这会导致中脑边缘多巴胺能神经元的激活,并增加伏隔核中多巴胺的释放。伏隔核中多巴胺受体的激活会激活下丘脑不确定多巴胺能神经元,从而在室旁核中释放多巴胺,进而激活投射到脊髓并介导阴茎勃起的催产素能神经元(参见上文以及 Melis 等人,2007,2009a;Succu 等人,2008)。
2.4。 杏仁核
杏仁核是富含催产素纤维和受体的另一脑区(参见Freund-Mercier等,1987; Vaccari等,1998; Uhl-Bronner等,2005)。 这里的催产素被认为涉及不同的功能,从抗焦虑,社会记忆和认知,社会强化学习,情感共情,情绪面孔处理和人类恐惧到勃起功能和性行为(参见Kondo等,1998; Dominguez et例如,2001; Ebner等,2005; Huber等,2005; Domes等,2007; Petrovic等,2008; Lee等,2009; Donaldson和Young,2009; Hurlemann等。 ,2010)。 然而,仅在最近才发现催产素在雄性大鼠中诱导阴茎勃起的能力(Melis等人,2009b)。 这种反应伴随着从伏隔核外壳获得的透析液中细胞外多巴胺浓度的增加,如催产素注射到腹侧下丘(Melis等,2009b)后发现的。 注射到杏仁核的后内侧皮质核中的催产素诱导阴茎勃起的机制目前尚不清楚。 可获得的数据显示阴茎勃起和伏隔核中透析液中细胞外多巴胺浓度的增加都是由催产素受体的激活所介导的,因为催产素受体拮抗剂d(CH2)5Tyr都消除了这两种反应( Me)2-Orn8-血管紧张素在催产素前几分钟注射到杏仁核(Melis等,2009b)。
无论催产素在杏仁核后内侧皮质核中激活何种机制,该肽诱导的性反应都会被注射到伏隔核壳部的顺式氟哌噻吨阻断所有多巴胺能受体,以及注射到腹侧被盖区(而非伏隔核)的(+)MK-801阻断NMDA受体所消除,这与注射到腹侧下托的催产素诱导阴茎勃起的情况类似(Melis等人,2009b)。这表明,注射到杏仁核后内侧核的催产素激活了腹侧被盖区的谷氨酸能神经传递。这反过来又激活了中脑边缘多巴胺能神经元,最终导致阴茎勃起。鉴于有研究表明,杏仁核的这一核与腹侧下托之间存在神经通路连接(Canteras 等人,1995;French 和 Totterdell,2003),这些发现提出了这两个脑区之间可能存在相互作用的可能性,尽管已经描述了从杏仁核到伏隔核或腹侧被盖区的直接通路(Kelley 和 Domesick,1982;Witter,2006)。
2.5。 脊髓
脊髓是中枢神经系统的另一个区域,含有催产素纤维和受体(Freund-Mercier等,1987; Uhl-Bronner等,2005),其中催产素诱导阴茎勃起(Tang et al。,1998) ; Veronneau-Longueville等,1999; Giuliano和Rampin,2000; Giuliano等,2001)。 如上所述,这些催产素纤维起源于下丘脑的室旁核,并有助于下行通路控制介导阴茎勃起的脊髓自主神经元。 实际上,这些纤维在胸腰椎和腰骶道中的背角神经节前交感神经和副交感神经细胞柱中形成突触接触,脊髓神经元支配阴茎海绵体(Marson和McKenna,1996; Giuliano和Rampin,2000; Giuliano等。 ,2001)。 这些突触接触通过标记源自阴茎的脊髓神经元并通过注射到海绵体中的特定逆行示踪剂到达脊髓来证明,结合双免疫荧光和共聚焦激光显微镜研究(Tang等,1998; Veronneau-Longueville)等人,1999)。 与这些研究一致,在麻醉的雄性大鼠中,鞘内注射累积剂量的催产素在腰骶部而不是胸腰椎水平,引起海绵体内压力以剂量依赖性方式上升。 通过用d(CH2)5Tyr(Me)2-Orn8-血管紧张素和骨盆神经切片(Giuliano和Rampin,2000; Giuliano等,2001)阻断催产素受体来消除这些作用。 这些结果表明,作用于腰骶脊髓的催产素增加海绵体内的压力,并且表明在室旁核的生理活化期间释放的催产素是突出到海绵体的脊柱前勃起神经元的有效激活剂。 有趣的是,催产素发挥其勃起作用的这些前勃起的脊髓神经元也接受来自延髓网状结构的细胞核巨噬细胞的5-羟色胺能神经元的突触接触(Marson和McKenna,1992; Tang等。,1998)。 这些5-羟色胺能神经元的破坏促进了雄性大鼠的射精和阴茎反射(Marson和McKenna,1992; Yells等,1992)。 由于刺激5HT2C受体的药物在脑室内给予阴茎勃起而不进入室旁核,并且阻断5HT2C受体的药物也会减少多巴胺激动剂和催产素诱导的阴茎勃起,而多巴胺拮抗剂不会减少5HT2C激动剂诱导的阴茎勃起(参见Stancampiano等,1994及其中的参考文献),还提出催产素促进勃起的5HT2C受体在腰骶脊髓水平上的作用(Stancampiano等,1994)。 或者,催产素可能通过直接作用于这些神经元起源的细胞核(参见Stancampiano等,1994)而影响脊髓下行5-羟色胺能神经元的活性。 与此可能性相符的是,有研究描述了一条起源于室旁核并到达延髓网状结构巨细胞旁核的催产素能通路(Bancila 等,2002),并且脊髓中位于多巴胺和催产素受体下游的 5HT2C 受体的激活被认为是这些化合物甚至 ACTH-MSH 肽的促勃起作用的常见机制(Kimura 等,2008)。
3。 中枢神经系统中催产素,多巴胺和谷氨酸与阴茎勃起之间的相互作用
如第一节所述,中枢神经系统中所有催产素能神经元均起源于室旁核及其周围结构。这些神经元的活动受多种神经递质和/或神经肽的调控。在室旁核水平上研究最多的神经递质和/或神经肽包括多巴胺、谷氨酸、γ-氨基丁酸(GABA)、一氧化氮、内源性大麻素、阿片肽、生长激素释放肽、VGF相关肽以及催产素本身。多巴胺、谷氨酸、生长激素释放肽、VGF衍生肽和催产素具有刺激作用,例如,当这些化合物及其激动剂注射到室旁核时,可促进阴茎勃起;而GABA、阿片肽和内源性大麻素具有抑制作用,例如,这些化合物或其激动剂可抑制阴茎勃起(参见Meisel和Sachs,1994;Witt和Insel,1994;Argiolas和Melis,1995、2004、2005;Giuliano和Rampin,2000、2004;McKenna,2000;Andersson,2001;Hull等人,2002)。
几行实验证据表明,这些催产素神经元和上述神经递质和神经肽参与控制不同生理环境中的勃起功能和性行为。 此外,在下丘脑外部区域释放的催产素,例如腹侧被盖区域,海马及其区域,杏仁核和脊髓可能影响催产素突触撞击的那些神经元的活动。 目前,唯一对阴茎勃起很重要的神经元,其中催产素突触撞击,确定地确定,是尾侧腹侧被盖区的中脑边缘多巴胺能神经元的细胞体,突出到伏隔核的外壳(Melis等,2007) ; Succu等,2008),以及从骶骨 - 骶管突出到海绵状肿瘤的勃起脊髓神经元(参见Giuliano和Rampin,2000; Giuliano等,2001)(另见2.2和2.5部分) 。 事实上,尽管在腹侧下丘,杏仁核和脊髓中也发现了催产素神经突触和受体,但这些区域对阴茎勃起都很重要(见上文),在这些区域中神经递质存在于神经元中。哪些催产素神经末梢撞击,仍然是未知的。
本综述的这一部分简要总结了近期关于催产素注射到尾侧腹侧被盖区、海马腹侧下托和脊髓后促勃起作用机制的文献。重点关注该肽与这些区域中的多巴胺和谷氨酸的相互作用,以及这种相互作用在勃起功能中枢调控中可能发挥的作用。首先简要概述了多巴胺和谷氨酸对室旁核催产素能神经元的影响,这些神经元在勃起功能中也起着关键作用,目的是让读者了解该领域的研究尚处于早期阶段,因为这些研究已被广泛综述(参见Argiolas和Melis,1995、2004、2005;Melis和Argiolas,2003)。此外,本文还特别关注了最新的研究结果,这些结果表明,多巴胺-催产素联系和谷氨酸-催产素联系不仅在性表现(阴茎勃起和性交)中发挥着重要作用,而且在性唤起和性动机中也发挥着重要作用。
3.1。 多巴胺 - 催产素在室旁核中的相互作用
在发现阿扑吗啡注射到室旁核可诱发阴茎勃起后,人们立即提出了多巴胺激动剂通过激活中枢催产素能神经元来诱发阴茎勃起的理论(Melis 等,1987)。随后,人们发现脑室内注射催产素受体拮抗剂 d(CH2)5Tyr(Me)2-Orn8-血管加压素几乎完全抑制了由脑室内注射催产素以及皮下注射阿扑吗啡引起的阴茎勃起(Argiolas 等,1987b)。这些结果之后,其他研究也显示了类似的结果,当脑室内注射d(CH2)5Tyr(Me)2-Orn8-催产素,并将阿扑吗啡直接注射到室旁核时(Melis等人,1989b),这表明多巴胺激动剂通过激活投射到下丘脑外脑区,特别是脊髓的室旁催产素能神经元来诱导阴茎勃起(参见Argiolas和Melis,1995、2004、2005)。与此假设一致,最近在麻醉大鼠中发现,非肽类催产素受体拮抗剂阻断腰骶催产素受体能够消除多巴胺激动剂阿扑吗啡引起的阴茎海绵体内压升高,这为参与阴茎勃起的室旁脊髓催产素通路提供了证据(Baskerville 等人,2009)。
旨在确定负责诱导阴茎勃起的多巴胺受体的研究发现,在室旁核中,多巴胺受体激动剂通过作用于 D2 家族的多巴胺受体来诱导阴茎勃起,这与全身给药的多巴胺受体激动剂所发现的情况相同(参见 Melis 等人,1987;Eaton 等人,1991;Melis 和 Argiolas,1995a)。因此,将强效混合型 D1/D2 受体激动剂阿扑吗啡和强效选择性 D2 受体激动剂喹吡罗注射到下丘脑核中,发现它们能够以剂量依赖的方式诱导阴茎勃起,而选择性 D1 受体激动剂 SKF 38393 则不能。这些 D2 受体激动剂诱导的性反应可被 D2 受体拮抗剂(如氟哌啶醇和左舒必利)消除,但不能被选择性 D1 受体拮抗剂 SCH 23390 消除(Melis 等,1987)。遥测研究也证实了阿扑吗啡注射到室旁核后能诱导阴茎勃起。研究表明,注射到室旁核的多巴胺激动剂能够增加清醒雄性大鼠的阴茎海绵体内压,而不会改变全身血压(Chen et al., 1999; Giuliano and Allard, 2001),这与全身注射后的结果一致(Bernabè et al., 1999)。这些研究还证实了D2受体的主要作用,因为D1受体激动剂注射到室旁核后通常无法增加阴茎海绵体内压(Chen et al., 1999)。
当时已有多项实验证据表明,刺激室旁核D2受体可诱发阴茎勃起,而这些受体位于催产素能神经元的胞体上。首先,室旁核含有多巴胺能神经末梢,这些神经末梢属于所谓的下丘脑不确定多巴胺能神经元。这些神经元的胞体位于Dahlstrom和Fuxe(1964)定义的A13和A14组,广泛分支并支配多个下丘脑结构,包括投射至神经垂体和/或下丘脑外脑区的室旁核催产素能神经元(Buijs等,1984;Lindvall等,1984)。
这些多巴胺能神经元参与控制阴茎勃起和交配的室旁水平是由微透析研究支持的,显示细胞外多巴胺和3,4-二羟基苯乙酸(DOPAC),其主要代谢产物,在其透析液中的浓度增加。当存在不可接受的卵巢切除的雌激素+孕酮引发的接受雌性时,性有效雄性大鼠的室旁核显示出非接触性勃起(Melis等,2003)。
当允许与发情雌性交配时,多巴胺和DOPAC的浓度升高更为显著(Melis等人,2003),这在内侧视前区(Hull等人,1995)和伏隔核(Pfaus和Everitt,1995)中均有发现。其次,多项研究表明,刺激室旁核D2受体诱发的阴茎勃起是由这些区域释放的催产素介导的。相应地,给予能诱发阴茎勃起的剂量的阿扑吗啡,不仅能提高大鼠和猴子血浆中的催产素浓度(Melis等人,1989a;Cameron等人,1992),还能提高下丘脑外脑区(如海马)中的催产素浓度(Melis等人,1990)。与这些结果一致,最近的研究表明,向室旁核注射能诱发阴茎勃起的剂量的阿扑吗啡也能增加伏隔核中的细胞外多巴胺浓度,而向腹侧被盖区注射催产素受体拮抗剂d(CH2)5Tyr(Me)2-Orn8-血管加压素可降低这种作用(Succu等人,2007;Melis等人,2009a)(另见第4节)。第三,双侧室旁核电解损伤几乎完全消除了下丘脑外脑区的催产素(Hawthorn等,1985),从而消除了阿扑吗啡诱导的阴茎勃起(Argiolas等,1987a)。选择性催产素受体拮抗剂注射到侧脑室(而非室旁核)后,可剂量依赖性地降低阿扑吗啡诱导的阴茎勃起,其效力与这些化合物阻断催产素受体的效力相当(Melis等,1989b)。催产素受体拮抗剂还能极强地降低催产素以及阿扑吗啡诱导的男性性行为的促进作用(Argiolas等,1988,1989)。
关于多巴胺或多巴胺受体激动剂激活D2受体,进而增强催产素能神经元活性,从而在下丘脑外脑区和脊髓中释放催产素的机制,大量实验数据支持以下假设:D2受体的刺激会增加催产素能神经元胞体内的Ca2+离子浓度,进而激活胞体内存在的钙调蛋白依赖性酶——一氧化氮合酶(Vincent和Kimura,1992;Torres等,1993;Sanchez等,1994;Sato-Suzuki等,1998)。一氧化氮生成增加反过来又会激活催产素能神经元。因此,(1)有机钙通道阻滞剂和强效选择性N型电压依赖性Ca2+通道阻滞剂——芋螺毒素GVIA(McCleskey等人,1987)可阻止阿扑吗啡引起的阴茎勃起,该阻滞剂被注射到室旁核中(参见Argiolas等人,1990及其参考文献);(2)一氧化氮合酶抑制剂被注射到室旁核中可阻止阿扑吗啡引起的阴茎勃起(Melis等人,1994c); (3) 给予能诱导阴茎勃起的剂量的阿扑吗啡和其他D2受体激动剂,可增加脑内微透析获得的室旁核透析液中一氧化氮的生成;而给予能降低D2受体激动剂诱导的阴茎勃起的剂量的室旁核一氧化氮合酶抑制剂,则可降低这种一氧化氮的生成(Melis等,1996)。一氧化氮激活室旁核催产素能神经元的机制尚不清楚,但现有数据表明,一氧化氮作为细胞内信使发挥作用,且鸟苷酸环化酶不参与其中。事实上,环磷酸鸟苷(cGMP)的活性磷酸二酯酶抗性类似物8-溴-环磷酸鸟苷(2-Br-cGMP)被注入室旁核后,无法诱导阴茎勃起(图2)(参见Melis和Argiolas,1995b及其参考文献)。
上述解释常被认为缺乏说服力,主要是因为多巴胺D2受体的刺激通常通过不同的G蛋白偶联机制抑制而非兴奋含有这些受体的神经元胞体(参见Sokoloff和Schwartz,1995)。然而,最近发现的G蛋白偶联多巴胺D4受体(D2受体家族成员,包括D2、D3和D4)为这种差异提供了一种可能的解释,该解释与多巴胺直接刺激室旁核催产素能神经元的观点相符。刺激D4受体可增加含有该受体亚型克隆版本的细胞制备物中的Ca2+内流(Moreland等,2004)。更重要的是,选择性D4受体激动剂(例如ABT 724)(N-甲基-4-(2-氰基苯基)哌嗪基-3-甲基苯甲酰胺马来酸盐)被发现全身给药后能够诱导雄性大鼠阴茎勃起(Brioni等人,2004)。而选择性D2受体亚型激动剂PNU-95666E(R-5,6-二氢-N,N-二甲基-4-咪唑并[4,5,1-i]喹啉-5-胺)则未观察到此效应(Hsieh等人,2004),并且也无法增加含有克隆D4受体亚型的细胞制备物中的Ca2+内流(Brioni等人,2004;Moreland等人,2004)。根据上述假设和发现,PD 168,077(N-甲基-4-(2-氰基苯基)哌嗪-3-甲基苯甲酰胺马来酸盐)、PIP-3EA(2-[4-(2-甲氧基苯基)哌嗪-1-基甲基]咪唑并[1,2-a]吡啶)和其他选择性D4受体激动剂(Heier等人,1997;Melis等人,2006b;Löber等人,2009)在全身注射、脑室内注射和室旁核注射时均能诱导阴茎勃起,尽管其效果不如阿扑吗啡。这些 D4 受体激动剂的促勃起作用可被选择性 D4 受体拮抗剂 L-745,870(3-(4-[氯苯基]哌嗪-1-基)-甲基-1H-吡咯并[2,3-B]吡啶三盐酸盐)所阻止(Patel 等人,1997;Melis 等人,2005,2006b;Löber 等人,2009)。
最后,上述D4受体激动剂的前勃起效应也被一氧化氮合成酶抑制剂(由室旁核给予)和d(CH2)5Tyr(Me)2-Orn8-vasotocin(一种选择性催产素受体拮抗剂)降低。给予icv但不在室旁核。 这些结果符合D4受体激动剂通过激活一氧化氮合酶,并在下丘脑外脑区释放催产素来刺激催产素神经元的假设,这反过来促进阴茎勃起,如阿扑吗啡和经典D2激动剂所示(Melis等。,2005,2006b;Löber等,2009)。
上述发现也支持以下假设:多巴胺通过作用于位于室旁核催产素能神经元胞体上的D4受体诱导阴茎勃起,导致Ca2+流入催产素能神经元胞体,进而增加一氧化氮的生成。如前所述,一氧化氮反过来激活下丘脑外脑区和脊髓中的催产素能神经元,从而释放催产素。值得注意的是,多巴胺受体是近期才通过使用高选择性D2、D3和D4受体抗体以及催产素抗体的双重免疫荧光研究在室旁核催产素能神经元胞体上发现的。这些研究表明,所有三种 D2 受体亚型(D2、D3 和 D4)均有表达,它们分别共定位于室旁核(以及视上核和内侧视前区)催产素能神经元的细胞体中(Baskerville 和 Douglas,2008;Baskerville 等人,2009)。
这为多巴胺及其D2受体激动剂可能通过直接激活投射至上述下丘脑外脑区(例如脊髓、腹侧被盖区、海马和杏仁核)的催产素能神经元而诱发阴茎勃起提供了强有力的神经解剖学支持。然而,这些发现并未有助于识别刺激后引起勃起反应的D2受体亚型。遗憾的是,即使是旨在识别室旁核中被多巴胺受体激动剂激活的催产素能神经元的研究也未能提供任何帮助。事实上,尽管混合型多巴胺受体激动剂(例如阿扑吗啡)、选择性D2受体激动剂(例如喹吡罗,其作用于所有D2受体亚型)或选择性D4受体激动剂对不同多巴胺受体亚型的活性各不相同,但它们都能激活催产素能神经元,这可以通过室旁核小细胞催产素能神经元中FOS蛋白的增加来衡量(Bitner等人,2006)。然而,这一发现最近受到了质疑,因为仅在喹诺罗兰(主要作用于D2和D3受体亚型)诱导阴茎勃起时才观察到室旁核催产素能神经元中FOS蛋白的增加,而PD 168077(一种D4受体激动剂)则没有这种作用,尽管这两种化合物都能诱导性反应(Baskerville等人,2009)。
然后需要进一步用其他D2受体亚型(主要是D2和D3)的选择性激动剂进行实验,以确定每种多巴胺受体亚型在控制室旁水平的勃起功能中的确切作用。 在这方面,如前所述,阿扑吗啡有效地作用于所有多巴胺受体亚型(参见Brioni等,2004及其中的参考文献),当注射到室旁室时,它比D4受体激动剂更有效地诱导阴茎勃起。核。 这可以通过与测试的D4受体激动剂相比,阿扑吗啡对D4受体的更高亲和力来解释,或者D4受体激动剂可以充当D4受体部分激动剂,或者阿扑吗啡可以伴随激活不同的多巴胺受体亚型。与仅由D2受体亚型的D4受体激动剂激活相比,产生更高的催产阴性勃起的催产素神经元活化。
多巴胺D1和D2受体之间的相互作用已在内侧视前区水平上被描述为控制性行为(参见Hull等人,1989)。如果选择性D2受体激动剂无法诱导阴茎勃起(Hsieh等人,2004)(但参见Depoortère等人,2009)得到证实,例如即使在将这些化合物注射到室旁核后也是如此,则应详细分析D3受体单独或与D4受体共同在激活介导阴茎勃起的催产素能神经元中发挥的重要作用(参见Baskerville等人,2009)。遗憾的是,目前尚无选择性D2和D3受体激动剂(例如,在体外对这两种受体亚型的亲和力至少相差四到五个数量级的激动剂)。因此,近期提出的D3受体介导经典D2受体激动剂诱导的阴茎勃起的观点(主要基于体外实验中鉴定出的假定D3受体拮抗剂能够降低经典D2激动剂(如阿扑吗啡、喹吡罗和普拉克索,这些药物能有效激活所有多巴胺D2受体亚型)诱导的阴茎勃起(Collins等人,2009))无疑需要通过其他实验进行验证。此外,由于本研究未发现D4受体激动剂对阴茎勃起有任何影响,这与上述研究结果截然相反,后者表明D4受体激动剂具有促勃起作用,因此这种验证也十分必要。事实上,即使阿扑吗啡在D4受体敲除小鼠中诱导阴茎勃起(和打哈欠)的能力与野生型D4受体敲除小鼠相同,并且D3受体拮抗剂能够消除这些动物的阿扑吗啡反应(Collins等人,2009),也不能被视为D3受体亚型在D2受体激动剂诱导的阴茎勃起中发挥选择性作用的决定性证据。撇开物种差异不谈,对神经递质/神经肽和/或神经递质/神经肽受体基因敲除(神经递质/神经肽和/或神经递质/神经肽受体敲除动物)的研究通常会进一步增加神经递质和/或神经肽及其受体在性功能中的作用的确认难度和复杂性。具体而言,催产素基因敲除产生的催产素敲除小鼠能够正常交配和交媾,仿佛催产素对于交配和交媾并非必要。此外,纯合催产素敲除雌性小鼠也表现出正常的交配和分娩,尽管其泌乳功能明显受损(Nishimori et al., 1996; Young et al., 1996)。编码神经元一氧化氮合酶的基因敲除也会产生一氧化氮合酶敲除小鼠,这些小鼠同样能够正常交配和交媾(Huang et al., 1993)。尽管一氧化氮合酶产生一氧化氮,而一氧化氮是阴茎勃起的主要生理介质之一,在阴茎水平(Burnett等人,1992;Rajfer等人,1992)以及中枢水平(下丘脑室旁核)(Argiolas,1994;Benelli等人,1995;Melis等人,1998)均发挥作用,但上述情况仍然发生。然而,这些发现可能揭示了生殖生理学的一个重要特征,即中枢和外周水平调控生殖生理的系统具有冗余性。
这种冗余性无疑具有进化起源,因为它确保了基因传递给下一代,从而保障物种的生存。因此,D4受体基因的缺失并不改变阿扑吗啡的促勃起作用,这表明D4受体(如同催产素和一氧化氮一样)只是控制勃起功能的众多介质中的几种,而不是表明这些受体在控制阴茎勃起和性行为中不起作用。另一项研究(Depoortère等人,2009)最近报道,全身性给予不同品系雄性大鼠D4激动剂未能诱导阴茎勃起。然而,与Collins等人的研究结果相反, (2009),为了使不同 D2 受体亚型在控制阴茎勃起中的作用更加令人费解,该研究还表明,全身性给予假定的选择性 D3 受体拮抗剂无法降低对阿扑吗啡促勃起作用更敏感的雄性大鼠品系中阿扑吗啡诱导的阴茎勃起,而选择性 D2 拮抗剂 L-741,626(3-[[4-(4-氯苯基)-4-羟基哌啶-1-基]甲基-1H-吲哚)则拮抗了性反应(和打哈欠),这使得作者认为 D2 受体,而不是 D3 和 D4 受体,才是 D2 激动剂诱导的阴茎勃起中的主要作用(Depoortère 等,2009)。最后,不能完全排除多巴胺受体激动剂对介导阴茎勃起的催产素能神经元的兴奋作用是间接的而不是直接的,例如,是由其他神经递质神经肽的活性变化介导或影响的,这些神经肽能够调节室旁核中催产素能神经元的活性。
3.2。 室旁核中的谷氨酸 - 催产素相互作用
下丘脑室旁核富含以兴奋性氨基酸(例如谷氨酸和天冬氨酸)为神经递质的突触(Van Den Pol,1991)。该核团中的兴奋性氨基酸参与多种功能,包括阴茎勃起和性行为(Roeling等,1991;Melis等,1994b,2000,2004b)。因此,当将 N-甲基-D-天冬氨酸 (NMDA)(一种 NMDA 受体亚型的选择性激动剂)注射到自由活动的大鼠的室旁核中时,发现它能够诱导阴茎勃起,而 (±)-_-氨基-3-羟基-5-甲基-异恶唑-4-丙酸 (AMPA)(一种 AMPA 受体亚型的选择性激动剂)或 (±)-反式(1)-氨基-1,3-环戊烷二羧酸 (ACPD)(一种代谢型受体亚型的选择性激动剂)则不能(Melis 等,1994b)。 948 MR Melis, A. Argiolas / Neuroscience and Biobehavioral Reviews 35 (2011) 939-955 NMDA 的促勃起作用可被非竞争性 NMDA 受体拮抗剂 (+)MK-801 阻断(Woodruff 等,1987),该拮抗剂注射至室旁核后可发挥作用(Melis 等,1994b)。与这些结果一致,在旨在监测海绵体内压的遥测研究中,当将 NMDA 注射至清醒或麻醉雄性大鼠的室旁核时,其增加海绵体内压的活性远高于其他兴奋性氨基酸受体亚型的激动剂(Zahran 等,2000;Chen 和 Chang,2003)。
如前文对催产素和多巴胺所述,介导阴茎勃起的NMDA受体可能位于催产素能神经元的胞体中,因为兴奋性氨基酸神经末梢会压迫室旁核中的催产素能神经元胞体(Van Den Pol,1991)。与多巴胺受体激动剂类似,NMDA的促勃起作用显然是通过激活催产素能神经传递介导的,并且可以通过脑室内注射催产素拮抗剂d(CH2)5Tyr(Me)2-Orn8-血管加压素来消除,但不能通过脑室内注射到室旁核来消除(参见Argiolas和Melis,1995、2004、2005及其参考文献)。同样,NMDA 诱导的催产素能神经传递的激活也是一氧化氮合酶激活的继发性反应,因为将一氧化氮合酶抑制剂(N-硝基-N-甲基-L-精氨酸甲酯和 N-甲基-硫代-L-瓜氨酸)注入室旁核可以阻止 NMDA 诱导的阴茎勃起,而将能诱导阴茎勃起的剂量的 NMDA 注射到室旁核中,会增加下丘脑核中一氧化氮的产生(参见 Argiolas 和 Melis,1995、2004、2005 年及其参考文献)。至于多巴胺受体激动剂,NMDA诱导的一氧化氮合酶激活也可能继发于催产素能细胞体中Ca2+内流的增加,这种增加是通过Ca2+通道偶联的NMDA受体实现的,这已在多种神经标本中得到证实(综述见Snyder,1992;Southam和Garthwaite,1993;Schuman和Madison,1994及其参考文献)。一氧化氮反过来激活催产素能神经传递(见上文)。激活介导阴茎勃起的室旁核催产素能神经元的谷氨酸能投射的起源尚不清楚,尽管一些神经解剖学和电生理学证据表明,它们可能至少部分起源于海马(Saphier和Feldman,1987;Chen等,1992)。尽管还需要进一步研究来更好地阐明谷氨酸能投射至室旁核的起源,但微透析研究已明确支持谷氨酸在室旁核中参与阴茎勃起和性行为的调控。相应地,当雄性大鼠在无法接触到的、经雌激素+孕激素预处理的、处于发情期的雌性大鼠面前出现非接触性勃起时,从其室旁核获得的透析液中谷氨酸和天冬氨酸的细胞外浓度升高(Melis等,2004b)。这种阴茎勃起也由中枢催产素能传递的激活介导(Melis等,1999a,b)。当允许与发情期雌性大鼠交配时,这种升高更为显著(Melis等,2004a)。根据阴茎勃起和交配过程中室旁核兴奋性氨基酸活性增加的假设,阻断室旁核中的 NMDA 受体可减少非接触性勃起和交配行为(交配过程中会发生阴茎勃起),并且这种减少会导致下丘脑核团中一氧化氮产生的增加减少(Melis 等人,2000)。在用CB1受体拮抗剂SR 141761A阻断大麻素CB1受体后,室旁核中也观察到了细胞外谷氨酸浓度的升高。该拮抗剂SR 141761A可通过侧脑室或直接注射到室旁核,剂量足以诱导阴茎勃起(参见Succu等人,2006;Castelli等人,2007)。谷氨酸浓度的升高导致催产素能神经元胞体内的NO合酶被激活,从而增加NO的产生。如上所述,NO反过来激活催产素能神经元,进而介导阴茎勃起。与此机制一致,SR 141761A 诱导的阴茎勃起可通过阻断 NMDA 受体和一氧化氮合酶抑制剂而减少,但可通过阻断室旁核中的多巴胺或催产素受体而减少,而可通过脑室内注射催产素受体拮抗剂阻断中枢催产素受体而阻止(Melis 等人,2004a,2006a)。
3.3。 腹侧被盖区的催产素 - 多巴胺相互作用
当以剂量依赖的方式注射到腹侧被盖区的尾部时,催产素诱导阴茎勃起(Melis等,2007)。 单侧注射的最低活性剂量是20 ng,而测试的最高剂量是100 ng。 催产素作用是由催产素受体的激活介导的,因为通过在尾侧腹侧被盖区域中预先注射催产素拮抗剂d(CH2)5Tyr(Me)2-Orn8-血管紧张素来消除性反应。 这些受体位于多巴胺能神经元的细胞体中,其主要突出于伏隔核的壳。 因此,(1)双重免疫荧光研究表明,在尾侧腹侧被盖区域,催产素纤维与多巴胺能神经元的细胞体紧密接触,其中大部分为酪氨酸羟化酶的阳性标记,并含有先前的逆行示踪剂Fluorogold注射到伏隔核(Melis等,2007)的壳中,和(2)腹侧被盖区催产素诱导的阴茎勃起同时伴随着从壳中获得的透析液中细胞外多巴胺浓度的增加。伏隔核(Melis等,2007)。 催产素诱导的阴茎勃起也伴随着腹侧被盖区域中一氧化氮产生的增加而发生,这两种反应不仅受到d(CH2)5Tyr(Me)2-Orn8-血管紧张素和一氧化氮合酶抑制剂S-的拮抗作用。甲基硫代-1-瓜氨酸,还有_芋螺毒素,电压依赖性Ca2 +通道阻断剂,以及ODQ(1H- [1,2,4]恶二唑[4,3-a]喹喔啉-1-酮),一种强效的鸟苷酸抑制剂环化酶,全部在催产素前的尾侧腹侧被盖区域给出(Succu等,2008)。 由于许多被催产素纤维接触的Fluorogold标记的多巴胺能细胞体被发现对尾侧腹侧被盖区域中的酪氨酸羟化酶呈阳性,因此也被标记为一氧化氮合酶和鸟苷酸环化酶(Succu等,2008),催产素 - 诱导的阴茎勃起可以通过以下机制介导。 肽对多巴胺能细胞体中的催产素受体的激活增加了多巴胺能神经元细胞体内的Ca2 +流入。 这激活了一氧化氮合成酶,一种Ca2 + - 钙调蛋白依赖性酶,从而增加了一氧化氮的产生。 一氧化氮反过来激活鸟苷酸环化酶,导致环状GMP浓度增加。 环状GMP激活投射到伏隔核的多巴胺能神经元。 注射到尾侧腹侧被盖区域的催产素引起的阴茎勃起中环状GMP的作用也得到了8-溴环GMP(一种活性磷酸二酯酶抗性环GMP类似物)注射到阴道勃起时诱导阴茎勃起的能力的支持。尾侧腹侧被盖区域,并增加伏隔核中透析液中的细胞外多巴胺(Succu等,2008; Melis等,2009a)。 这与一氧化氮激活室旁核中的催产素神经元的机制不一致,8-溴 - 环GMP在注入该细胞核时不能诱导阴茎勃起(Melis和Argiolas,1995b)(图2)。 2)。 注射到尾侧腹侧被盖区的催产素诱发阴茎勃起时,伏隔核释放的多巴胺的作用得到了以下证据的支持:注射到伏隔核的强效多巴胺受体拮抗剂氟哌啶醇可以降低催产素反应(Melis 等人,2007)。至于伏隔核中多巴胺激活的神经通路导致阴茎勃起,这些仍然是未知的。 然而,现有数据表明这些途径激活了下丘脑室旁核的多巴胺神经传递。 因此,催产素诱导的阴茎勃起伴随着细胞外多巴胺的增加而不仅在 伏隔核,但也在室旁核,并被多巴胺受体拮抗剂氟哌啶醇注射到室旁核(Melis等,2007)。 一个总之,这些结果支持这样的观点,即催产素神经元起源于室旁核并投射到尾侧腹侧被盖区域,当激活释放该区域的催产素时,从而激活NO-环状GMP信号系统, 这反过来激活中脑边缘多巴胺能神经元 (Melis等,2007,2009a; Succu等,2008)。 在伏隔核中释放的多巴胺反过来激活神经通路,导致下丘脑多巴胺能神经元的激活,其刺激向脊髓介导阴茎勃起的室旁催产素神经元。 同时,在室旁核中释放的多巴胺也可能激活投射到下丘脑外脑区域的催产素神经元,例如腹侧被盖区域,海马体,杏仁核以及可能的其他脑区域。
如上所述,与此假设一致,向室旁核注射能诱导阴茎勃起的阿扑吗啡,也会增加伏隔核的细胞外多巴胺浓度;而向腹侧被盖区注射催产素受体拮抗剂d(CH2)5Tyr(Me)2-Orn8-血管加压素,则会减弱这种效应(Succu等人,2007;Melis等人,2009a)。综上所述,上述神经通路可能构成一个假想的神经环路,该环路涉及多巴胺、催产素和其他神经递质(例如谷氨酸,见下文),不仅影响性功能,还影响性动机和性奖赏(见第4节)。
3.4。 催产素 - 谷氨酸相互作用在海马腹侧下丘脑
催产素以剂量依赖性方式注射到腹侧而不是背侧下丘中诱导阴茎勃起(Melis等,2009b)。 性反应是由催产素受体的刺激介导的,通过先前注射给予催产素的相同部位的d(CH2)5Tyr(Me)2-Orn8-血管紧张素而消除,如在其他脑区域中所见(见上文) 。 关于这些受体的定位,现有数据表明它们位于富含一氧化氮合酶的神经元的细胞体中。
因此,微透析研究表明,催产素诱导的阴茎勃起与腹侧下托中一氧化氮的产生增加同时发生,这种增加不仅会被预先注射一氧化氮合酶抑制剂 S-甲基-硫代-L-瓜氨酸和一氧化氮清除剂血红蛋白所消除,还会被 d(CH2)5Tyr(Me)2-Orn8-血管加压素所消除,所有这些药物都以拮抗阴茎勃起的剂量注入到催产素的同一部位(Melis 等人,2010)。更重要的是,催产素诱导的阴茎勃起还伴随着腹侧下托细胞外谷氨酸浓度的升高,而这种升高只能被腹侧下托内注射的非竞争性NMDA受体拮抗剂(+)MK-801部分拮抗(Melis等人,2010)。综上所述,这些结果表明,新生成的一氧化氮作为细胞间信使,激活谷氨酸神经传递,从而导致阴茎勃起,这可能是通过腹侧下托到海马外脑区的神经传出投射实现的。与此假设一致,向腹侧下托注射NMDA可剂量依赖性地诱导阴茎勃起,而预先向同一部位注射(+)MK-801可完全拮抗此效应,但S-甲基硫代瓜氨酸、血红蛋白或d(CH2)5Tyr(Me)2-Orn8-血管加压素则无此作用(Melis等,2010)。至于投射至由腹侧下托中兴奋性氨基酸(例如谷氨酸)激活的海马外脑区的神经传出通路,它们很可能是谷氨酸能通路,正如大多数海马传出通路一样。目前只能认为这些投射调节中脑边缘多巴胺能神经元的活动,进而调节室旁核中不确定下丘脑多巴胺能神经元的活动,从而激活介导阴茎勃起的催产素能神经元,正如前面讨论过的(见上文)。
因此,腹侧下托催产素引起的阴茎勃起与伏隔核壳部细胞外多巴胺浓度的增加同时发生,而这种增加,就像阴茎勃起一样,会被在催产素之前给予腹侧下托的d(CH2)5Tyr(Me)2-Orn8-血管加压素所消除(Melis等人,2009b)。此外,由于腹侧下托催产素诱导的阴茎勃起也会被注射到腹侧被盖区(而非伏隔核)的(+)MK-801所抑制(Melis等人,2009b),并且这种抑制与腹侧被盖区(而非伏隔核)细胞外谷氨酸水平的升高同时发生,而这两种反应均可被注射到腹侧下托(在注射催产素之前)的d(CH2)5Tyr(Me)-Orn8-血管加压素所消除(见图3),因此,中脑边缘多巴胺能神经元的激活很可能是腹侧被盖区谷氨酸能神经传递增强的继发性结果。这提示在腹侧被盖区存在一种控制阴茎勃起的谷氨酸-多巴胺相互作用。需要进一步研究以确定从下托到腹侧被盖区的促勃起传出谷氨酸能通路是直接的还是间接的,即通过前额皮质或其他脑区(参见 Melis 等人,2009b 及其参考文献)。由于室旁核也接受来自海马的谷氨酸能投射(见上文和 Saphier 和 Feldman,1987),而谷氨酸激活室旁核催产素能神经元,包括投射到腹侧被盖区的神经元(见 Argiolas 和 Melis,2005 及其参考文献),而腹侧被盖区的催产素可诱导阴茎勃起并增加中脑边缘多巴胺能神经元的活性(见上文),因此,人们很容易推测,室旁核催产素能神经元也可能至少部分参与了注射到腹侧下托的催产素激活中脑边缘多巴胺能神经元的过程(见第 4 节)。
4。 结束语
上述研究证实并扩展了早期发现,表明催产素在雄性大鼠中对阴茎勃起的中央控制起着关键作用,其作用机制涉及下丘脑室旁核和脊髓。特别是,最新研究表明,催产素还通过作用于其他脑区,例如腹侧被盖区、腹侧下托和杏仁核后内侧皮质核,来影响阴茎勃起。
在室旁核水平,最重要的新发现或许是发现室旁核(以及视上核和内侧视前区)催产素能神经元的胞体中表达所有D2家族的多巴胺受体(D2、D3和D4)(Baskerville和Douglas,2008;Baskerville等,2009)。这为以下假设提供了强有力的神经解剖学支持:多巴胺和多巴胺受体激动剂可能直接激活参与勃起功能的催产素能神经元,这些神经元不仅投射到脊髓,还投射到下丘脑外的脑区。在这方面,一项重要的发现是,阻断腰骶脊髓中的催产素受体可以降低多巴胺受体激动剂引起的阴茎海绵体内压升高(Baskerville等人,2009)。事实上,尽管该证据是在麻醉雄性大鼠中获得的,但这一发现证实了参与多巴胺受体激动剂诱导阴茎勃起的室旁脊髓催产素下行通路被激活。然而,催产素能细胞体中多巴胺受体的刺激所诱发的阴茎勃起,是否继发于D2家族(D2、D3或D4)特定多巴胺受体亚型的激活,或者这些受体亚型是否共同调节勃起反应,以及这种调节方式是否可能因阴茎勃起发生的背景而有所不同,仍有待确定(参见Moreland等人,2004;Enguehard-Gueiffier等人,2006;Melis等人,2006a,b;Löber等人,2009;Collins等人,2009;Depoortère等人,2009;Baskerville等人,2009)。
另一个重要的新发现是催产素不仅注入海马体的室旁核或CA1区,而且还注入腹侧被盖区,腹侧关节和杏仁核的后内侧皮质核,从而诱导阴茎勃起。 早期的研究表明,催产素增加了雄性大鼠的自发性阴茎勃起发作,但这些大脑区域没有进行测试,尽管它们接受了来自室旁核的腰骶脊髓催产素预测。 确实发现催产素能够增加自发的阴茎勃起发作,这种情况发生在没有任何性刺激的成年雄性大鼠中,例如那些起源于存在可接近或不可接受的接受性(雌激素 - 黄体酮)卵巢切除的雌性大鼠或生殖器的操作,当注入海马的室旁核和CA1区,但不是在背侧下管,侧间隔,尾状核,内侧视前区,腹内侧核和视上核(Melis等。 ,1986)。 在所有这些研究中,阴茎勃起通常在观察者从阴茎鞘中出现时计数,该观察者在实验期间不直接意识到给定的治疗,或者稍后通过用摄像机装置观察记录在录像带上的实验。 每个阴茎勃起事件持续0.5-1分钟并且通常伴有阴茎梳理和/或髋关节屈曲。 在这些大鼠中通常不进行实验以确定性经验,年龄或这些大鼠是否可以在低或高应答者中分配注射到不同脑区的催产素的勃起效应。 这也适用于大多数关于其他神经肽和增加自发阴茎勃起发作的药物的勃起效应的研究,包括多巴胺激动剂,兴奋性氨基酸,ACTH-MSH,己糖醇和VGF肽。 然而,这些化合物的勃起效应已经通过遥测方法反复证实,遥测方法通过自发地或通过不同途径(即全身性,脑室内或室内)给予这些化合物后海绵体内压力的增加来确定阴茎勃起的发生。在将压力微传感器直接植入海绵体后,直接进入特定的脑核(参见Bernabè等,1999)。 在腹侧被盖区域,腹侧下丘脑和杏仁核的后内侧核也催产素通过作用于催产素受体诱导阴茎勃起。 这导致中脑边缘多巴胺能神经元的激活,起源于腹侧被盖区并向伏隔核外壳突出, 通过从伏隔核壳获得的透析液中细胞外多巴胺浓度的增加和注射到这些下丘脑外区域的肽引起的勃起反应的减少来测量,在多巴胺能受体阻断后发现伏隔核(见下文)。 至于通过刺激这些大脑区域中的催产素受体激活的机制,其导致中脑边缘多巴胺能神经元的激活和阴茎勃起,最明确的是发生在尾侧腹侧被盖区域的那些。 实际上,这里的药理学和免疫荧光结果表明,催产素神经末梢撞击投射到伏隔核壳的多巴胺能神经元的细胞体(Melis等,2007,2009a; Succu等,2008)。 这些神经元中的许多富含一氧化氮合酶和鸟苷酸环化酶。 这些多巴胺能神经元的细胞体中的催产素受体的刺激引起一氧化氮合酶的活化,导致一氧化氮产生增加。 一氧化氮反过来激活鸟苷酸环化酶,从而增加环GMP的浓度, 通过脑内微透析获得的伏隔核透析液中细胞外多巴胺的增加来测量,这导致中脑边缘多巴胺能神经元的激活和伏隔核中多巴胺的释放(Succu等,2008) )。 在伏隔核中释放的多巴胺反过来激活导致阴茎勃起的神经通路。 这得到多巴胺受体拮抗剂氟哌啶醇和/或顺式氟哌噻醇注入伏隔核以减少腹侧被盖区催产素诱导的阴茎勃起的能力的支持(Succu等,2008)。 其中一条前勃起的通路似乎激活了下丘脑多巴胺能神经元,特别是那些向室旁性催产素神经元的细胞体投射的神经元。 实际上,注射到尾侧腹侧被盖区域的催产素不仅会增加伏隔核中的细胞外多巴胺,还会增加室旁核中的细胞外多巴胺,并且室旁核中多巴胺受体的阻断会显着减少腹侧被盖区催产素诱导的阴茎勃起(Succu et al。 ,2007,2008; Melis等,2007,2009a)。 存在这些伏核多巴胺 - 室旁多巴胺 - 室旁催产素 - 腹侧被盖区域催产素 - 多巴胺链接 前勃勃剂量的阿扑吗啡和D4受体激动剂PD 168077注射到室旁核以增加伏隔核壳中的细胞外多巴胺(Succu等,2007)的能力也提示了这一点。在给予腹侧被盖区域的d(CH2)5Tyr(Me)-Orn8-血管紧张素被消除(Melis等,2009a,也参见下文)。 然而,需要进一步的工作来确定连接伏隔核与下丘脑多巴胺能系统的神经通路。
当注射到腹侧下托或杏仁核的后内侧核中时,催产素诱导阴茎勃起并激活中脑边缘多巴胺能神经元的机制目前仅部分被理解。 在这些区域中,催产素还激活其自身的受体,这些受体导致一氧化氮合成酶的活化,从而增加一氧化氮的产生。 一氧化氮反过来激活未知的传出预测,这显然增加了腹侧被盖区域的谷氨酸能神经传递。 谷氨酸然后刺激中脑边缘多巴胺能神经元导致阴茎勃起。这一假设主要得益于注射到腹侧下丘脑的催产素增加腹侧被盖区域的细胞外谷氨酸的能力(图2)。 3)和非竞争性NMDA受体拮抗剂(+)MK-801注射到腹侧被盖区域,但不是伏隔核,以减少注射到腹侧下腔或后内侧核中的催产素引起的阴茎勃起杏仁核(Melis等,2009b)。 目前,更多细节可用于腹侧下丘脑催产素诱导的阴茎勃起。 在这里,催产素诱导的阴茎勃起似乎继发于位于含有一氧化氮合酶的神经元的细胞体中的催产素受体的激活。 这导致一氧化氮的产生增加,其通过充当细胞间信使而激活谷氨酸能神经传递,其机制类似于长期增强所描述的机制(参见Snyder,1992; Southam和Garthwaite,1993; Schuman和Madison,2004) 。 与此假设一致的是,催产素诱导的阴茎勃起伴随着来自腹侧下丘脑的透析液中细胞外谷氨酸的增加,并且通过NMDA刺激腹侧下丘脑中的兴奋性氨基酸受体,诱导阴茎勃起。 如上所述,谷氨酸反过来激活神经传出投射,导致腹侧被盖区域的中脑边缘多巴胺能神经元的激活。 如果这些机制也在杏仁核的后内侧核中有效,目前尚不清楚。 此外,有必要进一步研究证明(1)腹侧下丘脑和杏仁核后内侧核中的催产素神经末梢和受体位于含有一氧化氮合成酶(2)的神经细胞体中,如果这些神经元最终的话在兴奋性氨基酸(谷氨酸能)突触和(3)的控制下,以鉴定由一氧化氮激活的信号系统。 在这方面,值得注意的是,催产素能够增加尾侧腹侧被盖区多巴胺能神经元细胞体内的一氧化氮合酶活性,以及腹侧下丘脑和扁桃体后内侧核中尚未知的神经元的一氧化氮合酶活性。催产素在室旁核中的催产素神经元的细胞体中激活一氧化氮合酶的能力(Melis等,1997)。 然而,在腹侧被盖区域中,多巴胺能神经元细胞体中一氧化氮的产生增加通过激活鸟苷酸环化酶和增加环状GMP而导致这些神经元的活化,这在室旁核中不会发生。 因此,注射到室旁核中的8-溴 - 环GMP不会引起阴茎勃起,而当注射到腹侧被盖区时它会这样做。 然后,另一种与一氧化氮循环GMP系统不同的信号传导途径参与室旁水平的内源性和/或外源性一氧化氮介导阴茎勃起的催产素神经元的激活(Melis和Argiolas,1995b; Melis等,1997)(图。 1)。 另一方面,腹侧被盖区域中的环状GMP似乎在中脑边缘多巴胺能神经元的激活和在从雄性大鼠伏核的壳体获得的透析液中发生的细胞外多巴胺的增加中起关键作用。选择用于显示或不显示非接触性阴茎勃起,当存在不可接受的卵巢切除接受(雌激素+孕酮处理)雌性大鼠时。 在这些实验条件下,在显示非接触性阴茎勃起的雄性大鼠中,发现细胞外多巴胺浓度增加,如预期的那样,并且这种增加进一步增加,尽管只是适度地,通过给予尾侧腹侧被盖区域的磷酸二酯酶抑制剂(Sanna等)。 al。,2009)。 相反,在不表现出非接触性勃起的雄性大鼠中,伏隔核中未发现明显的细胞外多巴胺增加,而向尾侧腹被盖区给予磷酸二酯酶抑制剂后,细胞外多巴胺浓度显著增加,并观察到非接触性勃起(Sanna 等人,2009)。
催产素注射到腹侧被盖区,腹侧下方和杏仁核后内侧皮质核中的能力,以及注射到室旁核的多巴胺激动剂,诱导阴茎勃起和激活中脑边缘多巴胺能神经元的能力值得一些评论。 首先,当在生理环境中发生阴茎勃起时,例如在交配期间(当发生阴茎勃起时)或在非接触性阴茎勃起期间,可以操作类似于上面所述的那些机制。 这些勃起是由信息素介导的阴茎勃起与药物或催产素引起的阴茎勃起难以区分,当性功能强大的雄性大鼠被置于难以接受的接受(卵巢切除的雌激素+孕酮引发)雌性大鼠的存在时,这被认为是性的指标。唤醒(Sachs,1997,2007)。 事实上,尽管这些结果并未证明这些区域的催产素在生理环境中或药物给药后的阴茎勃起中发挥作用,但它们为早期发现增加了进一步的强度,表明这些脑区属于催产素集中起作用的区域。不仅可以在勃起前药物后看到自发的阴茎勃起事件,而且还可以改善男性(和女性)的性行为(参见Argiolas和Melis,2004及其中的参考文献)。 因此,用前勃起剂量的阿扑吗啡(一种经典的多巴胺激动剂(Melis等,1990)和d(CH2)5Tyr(Me)-Orn8-血管紧张素)治疗的雄性大鼠的海马中的催产素浓度增加,其阻断催产素受体,不仅在损害交配行为方面非常有效(Argiolas等,1987a),而且对性功能雄性大鼠中阿扑吗啡对男性交配行为的促进作用(Argiolas等,1987b),其中阴茎勃起发生。 d(CH2)5Tyr(Me)-Orn8-血管紧张素在减少性功能雄性大鼠的非接触性勃起方面也非常有效,当以纳克量给予侧脑室时,但不能进入PVN(Melis等,1999a)。
其次,中脑边缘多巴胺能神经元在食物、水和性活动等自然强化刺激的动机和奖赏特性中发挥着关键作用(Fibiger和Phillips,1988;Wise和Rompre,1989;Everitt,1990)。特别是,人们认为这些神经元释放的多巴胺介导了自然刺激的动机方面向目标导向行为的转化,例如在性活动中,寻找性伴侣和进行性交以获得奖赏和满足感(Goto和Grace,2005)。因此,在性成熟的雄性大鼠接触到无法接近的、卵巢切除的、雌激素 + 孕激素预处理的、处于发情期的雌性大鼠时,其伏隔核透析液中的细胞外多巴胺浓度会增加;当允许雄性大鼠与处于发情期的雌性大鼠交配时,这种增加甚至更高(Pfaus 和 Everitt,1995)。
第三,目前的结果支持这样的假设:神经回路直接或间接(通过腹侧下托和/或扁桃体的后内侧皮质核)和伏隔核连接室旁核和腹侧被盖区,并从此通过未知再次回到室旁核以控制投射到脊髓的催产素神经元的活动,介导阴茎勃起和投射到腹侧被盖区域,腹侧下棘和杏仁核的后内侧皮质核的催产素神经元,以这种方式调节中脑边缘多巴胺能神经元的活性(图4)。 这种复杂的神经回路可能在神经活动的整合中发挥作用,所述神经活动涉及在生理环境中控制男性性行为的完成(勃起 - 射精)和预期(激励和奖励)方面。 实际上,当暴露于非接触性勃起的雌性大鼠时,伏隔核(Pfaus和Everitt,1995)和性强效雄性大鼠的室旁核中的细胞外多巴胺增加,当发生非接触性勃起时,甚至在允许交配时更多,例如,当发生阴茎勃起时(Melis等,2003)。 因此,虽然有必要进一步研究以阐明内源性催产素在腹侧被盖区,腹侧下丘脑和杏仁核在非接触性勃起和性行为中的作用,但可以合理地假设这个假设的神经回路,同时有助于性行为的完善方面,同时也可以激活中脑边缘多巴胺能系统,提供神经基质,用于解释性活动的有益特性(Everitt,1990; Pfaus和Everitt,1995)。 在这方面,值得注意的是,注射到腹侧被盖区域的催产素激活的中脑边缘多巴胺能系统与阿片类药物,大麻素,苯丙胺,可卡因和酒精等滥用药物(Tanda等,1997)相同,并且发现催产素能够降低对可卡因,吗啡,酒精和大麻素的耐受性和依赖性(Kovacs等,1998; Cui等,2001)。 总之,似乎催产素不仅在腹侧被盖区释放,而且在腹侧下丘脑和杏仁核的后内侧皮质核中释放,可以激活中脑边缘多巴胺能神经元,这可能与性活动的有益和有益效果有关。 。 中脑边缘多巴胺能神经元的激活可以通过中脑边缘多巴胺能神经元的细胞体中的催产素受体直接激活,或者通过腹侧被盖区域中谷氨酸神经传递的激活而间接激活。
在伏核中释放的多巴胺反过来调节室旁核中的下丘脑多巴胺能神经元的活动,导致阴茎勃起(通过激活投射到脊髓的催产素神经元),或性动机和奖励(通过激活催产素)神经元突出到腹侧被盖区,腹侧下方或杏仁核的后内侧皮质核。 当在生理环境中发生阴茎勃起时(例如,非接触性勃起和交配)(Succu等,2007; Melis等,2003,2007),多巴胺也在伏隔核壳和室旁核中释放,它是可能中枢催产素神经元参与介导中脑边缘和下丘脑多巴胺能系统之间相互作用的神经回路。 这些神经回路不仅可以在性行为的完成阶段(例如,阴茎勃起和交配)中发挥作用,而且还可以在性动机,性唤起和性回报中发挥作用。
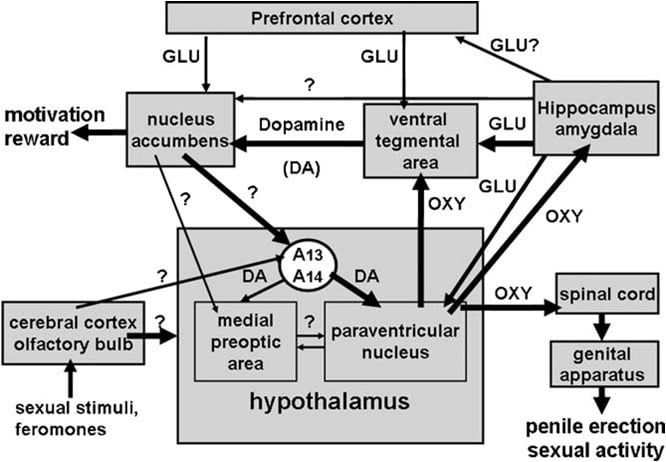
根据本章及既往研究结果,本文提出了一种假设的神经回路示意图,该回路涉及催产素对性动机、性奖励和性表现的影响。起源于室旁核并投射至脊髓的催产素能神经元,在多巴胺和谷氨酸(以及其他神经递质和/或神经肽)等物质的激活下,可通过激活投射至脊髓的催产素能神经元来促进阴茎勃起和性表现。室旁核中的多巴胺和谷氨酸(以及其他神经递质和神经肽)还能激活投射至腹侧被盖区的催产素能神经元,进而激活投射至伏隔核的中脑边缘多巴胺能神经元,最终调节性动机和性奖励。伏隔核释放的多巴胺会激活一些尚未明确的神经通路,进而增强下丘脑不确定多巴胺能神经元(起源于Dahlstrom和Fuxe定义的A13-A14神经元群)的活性,这些神经元会与其他神经元共同作用于催产素能神经元,包括投射到脊髓的神经元,最终导致阴茎勃起。此外,注射到尾侧腹侧被盖区、腹侧下托和杏仁核的催产素也能激活这一神经回路。这些脑区也接受来自室旁核的催产素能支配,可能通过直接或间接的谷氨酸能传出通路到达腹侧被盖区,从而调节性动机和阴茎勃起。最后,上述回路也可能被性刺激和信息素激活,因为在信息素介导的非接触性勃起和交配过程中,室旁核(以及内侧视前区)中的细胞外多巴胺和谷氨酸会增加(有关适当的参考文献,请参见参考文献列表)。
致谢这项工作得到了意大利大学和AA和MRM研究部的资助。
案例
Andersson,KE,2001。 阴茎勃起的药理学。 药理学。 牧师 53,417-450。 Argiolas,A.,1994。 一氧化氮是阴茎勃起的中枢介质。 神经药理学33,1339-1344。 Argiolas,A.,1999。 神经肽和性行为。 神经科学。 Biobehav。 牧师 23,1127-1142。 Argiolas,A.,Gessa,GL,1991。 催产素的中心功能。 神经科学。 Biobehav。 牧师 15,217-231。 Argiolas,A.,Melis,MR,1995。 阴茎勃起的神经调节:概述神经递质和神经肽的作用。 PROG。 神经生物学。 47,235-255。 Argiolas,A.,Melis,MR,2004。 催产素和室旁核在雄性哺乳动物性行为中的作用。 生理学。 Behav。 83,309-317。 Argiolas,A.,Melis,MR,2005。 阴茎勃起的中枢控制:下丘脑室旁核的作用。 PROG。 神经生物学。 76,1-21。 Argiolas,A.,Collu,M.,Gessa,GL,Melis,MR,Serra,G.,1988。 催产素拮抗剂d(CH2)5Tyr(Me)-Orn8-血管紧张素拮抗大鼠中的雄性交配行为。 E. J. 药理学。 149,389-392。 Argiolas,A.,Collu,M.,D'Aquila,P.,Gessa,GL,Melis,MR,Serra,G.,1989。 在大鼠中通过催产素拮抗剂d(CH2)5Tyr(Me)-Orn8-血管紧张素来预防阿扑吗啡对雄性交配行为的刺激。 药理学。 生物化学。 Behav。 33,81-83。 Argiolas,A.,Melis,MR,Gessa,GL,1985。 脑室内催产素诱导大鼠打哈欠和阴茎勃起。 E. J. 药理学。 117,395-396。 Argiolas,A.,Melis,MR,Gessa,GL,1986。 催产素:一种非常有效的阴茎勃起和雄性大鼠打哈欠的诱导剂。 E. J. 药理学。 130,265-272。 Argiolas,A.,Melis,MR,Mauri,A.,Gessa,GL,1987a。 室旁核损伤可防止阿扑吗啡和催产素引起的打哈欠和阴茎勃起,但不能通过大鼠的ACTH引起。 Brain Res。 421,349-352。 Argiolas,A.,Melis,MR,Vargiu,L.,Mauri,A.,Gessa,GL,1987b。 d(CH2)5Tyr(Me)-Orn8-血管紧张素,一种有效的催产素拮抗剂,可拮抗由催产素和阿扑吗啡诱导的阴茎勃起和打哈欠,但ACTH 1-24不能。 E. J. 药理学。 134,221-224。 Argiolas,A.,Melis,MR,Stancampiano,R.,Gessa,GL,1990。 _-芋螺毒素可预防阿朴吗啡和催产素诱导的阴茎勃起和雄性大鼠的打哈欠。 药理学。 生物化学。 Behav。 37,253-257。 Arletti,R.,Bertolini,A.,1985。 催产素刺激雌性大鼠的脊柱前凸行为。 神经肽6,247-255。 Arletti,R.,Bazzani,C.,Castelli,M.,Bertolini,A.,1985。 催产素可改善大鼠的雄性交配能力。 HORM。 Behav。 19,14-20。 Arletti,R.,Benelli,A.,Bertolini,A.,1990。 催产素刺激衰老雄性大鼠的性行为。 E. J. 药理学。 179,377-382。 Arletti,R.,Calzà,L.,Giardino,L.,Benelli,A.,Cavazzutti,E.,Bertolini,A.,1997。 性阳痿与催产素的产生减少和下丘脑室旁核中阿片肽的产生增加有关。 神经科学。 快报。 233,65-68。 Bancila,M.,Giuliano,F.,Rampin,O.,Mailly,P.,Brisorgueil,MJ,Clas,A.,Verge,D.,2002。 从下丘脑的室旁核直接投射到原发性细胞核的假定5-羟色胺能神经元的证据涉及控制大鼠的勃起。 E. J. 神经科学。 16,1240-1249。 Burnett,AL,Lowenstein,CJ,Bredt,DS,Chang,TSK,Snyder,SH,1992。 一氧化氮:阴茎勃起的生理介质。 科学257,401-403。 Baskerville,TA,Douglas,AJ,2008。 多巴胺和催产素之间的相互作用控制性行为。 PROG。 Brain Res。 170,277-289。 Baskerville,TA,Allard,J.,Wayman,C.,Douglas,AJ,2009。 阴茎勃起中的多巴胺 - 催产素相互作用。 E. J. 神经科学。 30,2151-2164。 Benelli,A.,Bertolini,A.,Poggioli,R.,Cavazzutti,E.,Calzà,L.,Giardino,L.,Arletti,R.,1995。 一氧化氮参与大鼠的男性性行为。 E. J. 药理学。 294,505-510。 Bernabè,J.,Rampin,O。,Sachs,BD,Giuliano,F.,1999。 大鼠勃起期间的海绵体内压力:基于遥测记录的综合方法。 上午。 J. 生理学。 276,R441-R449。 Bitner,RS,Nikkel,AL,Otte,S.,Martino,B.,Barlow,EH,Bhatia,P.,Stewart,AO,Brioni,JD,Decker,MW,Moreland,RB,2006。 大鼠下丘脑室旁核中的多巴胺D4受体信号传导:涉及立即早期基因诱导和丝裂原活化蛋白激酶磷酸化的天然偶联的证据。 神经药理学50,521-531。 Brioni,JD,Moreland,RB,Cowart,M.,Hsieh,GC,Stewart,AO,Hedlund,P.,Donnelly-Roberts,DL,Nakane,M.,Lynch 3rd。,J.,Kolasa,T.,Polakowski ,JS,Osinski,MA,Marsh,K.,Andersson,KE,Sullivan,JP,2004。 ABT-4激活多巴胺D724受体诱导大鼠阴茎勃起。 PROC 国家科。 ACAD。 科学 美国 101,6758-6763。 Buijs,RM,1978。 大鼠体内和体外的下丘脑血管加压素和催产素途径。 细胞组织研究 192,423-435。 Buijs,RM,Geffard,M.,Pool,CW,Hoorneman,EMD,1984。 视上核和室旁核的多巴胺能神经支配。 光学和电子显微镜研究。 Brain Res。 323,65-72。 Caldwell,JD,Prange,AJ,Pedersen,CA,1986。 催产素促进雌激素处理的雌性大鼠的性接受性。 神经肽7,175-189。 Cameron,JL,Pomerantz,SM,Layden,LM,Amico,JA,1992。 阿扑吗啡和D2受体激动剂对雄性和雌性猴子血浆中催产素浓度的多巴胺能刺激。 J. 临床。 内分泌学。 代谢。 75,855-860。 Canteras,NS,Simerly,RB,Swanson,LW,1995。 组织来自杏仁核内侧核的投射:大鼠的PHAL研究。 J. 比较。 神经学。 360,213-245。 Carmichael,MS,Humbert,R.,Dixen,J.,Palmisano,G.,Greeleaf,W.,Davidson,JM,1987。 血浆催产素在人类性反应中增加。 J. 临床。 内分泌学。 代谢。 64,27-31。 卡特,CS,1992。 催产素和性行为。 神经科学。 Biobehav。 牧师 16,131-144。 Carter,CS,Lederhendler,II,Kirkpatrick,B.,1997。 纽约科学院年刊的交互式神经生物学,第一卷。 807. 纽约科学院,纽约。 Castelli,MP,Piras,AP,Melis,T.,Succu,S.,Sanna,F.,Melis,MR,Collu,S.,Ennas,MG,Diaz,G.,Mackie,K.,Argiolas,A。 ,2007。 室旁核中的大麻素CB1受体和阴茎勃起的中枢控制:免疫细胞化学,放射自显影和行为研究。 神经科学147,197-206。 Chen,KK,Chang,LS,2003。 兴奋性氨基酸受体激动剂对大鼠下丘脑室旁核给药后阴茎勃起的影响。 J. Urol。 62,575-580。 Chen,KK,Chan,JYH,Chang,LS,Chen,MT,Chang,SHH,1992。 在大鼠中激活海马结构后诱导阴茎勃起。 神经科学。 快报。 141,218-222。 Chen,KK,Chan,JYH,Chang,LS,1999。 下丘脑室旁核多巴胺能神经传递在中枢调节大鼠阴茎勃起中的作用。 J. Urol。 162,237-242。 Collins,GT,Truccone,A.,Haji-Abdi,F.,Newman,AH,Grundt,P.,Rice,KC,Husbands,SM,Greedy,BM,Enguehard-Gueiffer,C.,Gueiffer,A.,Chen ,J.,Wang,S.,Katz,JL,Grandy,DK,Sunahara,RK,Woods,JH,2009。 多巴胺D2样激动剂的促勃起作用由大鼠和小鼠中的D3受体介导。 J. 药理学。 进出口。 疗法。 329,210-217。 Coolen,LM,Allard,J.,Truitt,WA,McKenna,KE,2004。 射精的中枢调节。 生理学。 Behav。 83,203-215。 Cui,SS,Bowen,RC,Gu,GB,Hannesson,BK,Yu,PH,Zhang,X.,2001。 通过锂预防大麻素戒断综合征:参与催产素神经元激活。 J. 神经科学。 21,9867-9876。 Dahlstrom,A.,Fuxe,K.,1964。 中枢神经系统中含有单胺的神经元存在的证据。 I. 在脑干神经元的细胞体中证明单胺。 Acta Physiol。 SCAND。 62(Suppl。 232),1-54。 Depoortère,R.,Bardin,L.,Rodrigues,M.,Abrial,E.,Aliaga,M.,Newman-Tancredi,A.,2009。 多巴胺D2样受体激动剂在大鼠中诱导的阴茎勃起和打哈欠:多巴胺D2的应变和贡献的影响,但不影响D3和D4受体。 Behav。 药理学。 20,303-311。 Domes,G.,Heinrichs,M.,Buchel,C.,Braus,DF,Herpertz,SC,2007。 催产素可以减弱杏仁核对情绪面部的反应,无论其价态如何。 生物学。 精神病学62,11871190。 Dominguez,J.,Riolo,JV,Xu,Z.,Hull,ME,2001。 内侧杏仁核对交配和内侧视前多巴胺释放的调节作用。 J. 神经科学。 21,349-355。 Donaldson,ZR,Young,LJ,2009。 催产素,加压素和社会性的神经遗传学。 科学322,900-904。 Eaton,RG,Markowski,VF,Lumley,LA,Thompson,JT,Moses,J.,Hull,EM,1991。 室旁核中的D2受体调节雄性大鼠的生殖器反应和交配。 药理学。 生物化学。 Behav。 39,177-181。 Ebner,K.,Bosch,OJ,Krömer,SA,Singewald,N.,Neumann,ID,2005。 大鼠中枢杏仁核中催产素的释放调节应激反应行为和兴奋性氨基酸的释放。 神经精神药理学30,223-230。 Enguehard-Gueiffier,C.,Hübner,H.,El Hakmaoui,A.,Allouchi,H.,Gmeiner,P.,Argiolas,A.,Melis,MR,Gueiffier,A.,2006。 2 - [(4-苯基哌嗪-1-基)甲基]咪唑并(二)吖嗪作为选择性D4-配体。 通过2- [4-(2-甲氧基苯基)哌嗪-1-基甲基]咪唑并[1,2-a]吡啶(PIP3EA)诱导阴茎勃起,其是一种有效的选择性D4激动剂。 J. 医学。 化学。 49,3938-3947。 Everitt,BJ,1990。 性动机:对雄性大鼠的食欲和交配反应机制的神经和行为分析。 神经科学。 Biobehav。 牧师 14,217-232。 Fibiger,HC,Phillips,AG,1988。 Mesocorticolimbic多巴胺系统和奖励。 安。 N. Y. ACAD。 科学 5,206-215。 法语,SJ,Totterdell,S.,2003。 个别伏隔核 - 投射神经元接受大鼠的基底外侧杏仁核和腹侧近端传入神经。 神经科学119,19-31。 954 MR 梅利斯,A。 Argiolas / Neuroscience and Biobehavioral Reviews 35(2011)939-955 Freund-Mercier,MJ,Richard,P.,1981。 脑室内注射催产素对大鼠乳汁排出反射的兴奋作用。 神经科学。 快报。 23,193-198。 Freund-Mercier,MJ,Richard,P.,1984。 催乳素在催乳过程中促进控制催产素神经元的电生理学证据。 J. 生理学。 (Lond。)352,447-466。 Freund-Mercier,MJ,Stoeckel,ME,1995。 催产素神经元上的体细胞树突状自身受体。 在:Ivell,R.,Russel,JA (编辑),催产素,细胞和分子方法的医学和研究。 进阶 进出口。 医学。 Biol。,365。 Plenum Press,纽约和伦敦,pp。 185-194。 Freund-Mercier,MJ,Stoeckel,ME,Palacios,JM,Pazos,JM,Richard,PH,Porte,A.,1987。 通过放射自显影研究Wistar大鼠脑中3H催产素结合位点的药理学特征和解剖学分布。 神经科学20,599-614。 Giuliano,F.,Rampin,O.,2000。 中央控制阴茎勃起。 神经科学。 Biobehav。 牧师 24,517-533。 Giuliano,F.,Allard,J.,2001。 多巴胺和性功能。 诠释。 J. 阳痿 13(Suppl。 3),18-28。 Giuliano,F.,Rampin,O.,2004。 神经控制勃起。 生理学。 Behav。 83,189-201。 Giuliano,F.,Bernabè,J.,McKenna,KE,Longueville,F.,Rampin,O.,2001。 催产素对麻醉大鼠的脊髓前凸作用。 Am J. 生理学。 雷古尔。 INTEG。 比较。 生理学。 280,R1870-R1877。 Goto,Y.,Grace,AA,2005。 多巴胺能调节伏隔核的边缘和皮质驱动在目标导向行为。 纳特。 神经科学。 8,805-812。 Hawthorn,J.,Ang,VT,Jenkins,JS,1985。 下丘脑室旁核,视上核和视交叉上核病变对大鼠脑和脊髓中加压素和催产素的影响。 Brain Res。 346,51-57。 Heier,RF,Dolak,LA,Duncan,JN,Hyslop,DK,Lipton,MF,Martin,LJ,Mauragis,MA,Piercey,MF,Nichols,NF,Schreur,PJ,Smith,MW,Moon,MW,1997。 (R)-5,6-二氢-N,N-二甲基-4H-咪唑并[4,5,1-ij]喹啉-5-胺)及其代谢物的合成和生物活性。 J. 医学。 化学。 40,639-646。 Hsieh,GC,Hollingsworth,PR,Martino,B.,Chang,R.,Terranova,MA,O'Neill,AB,Lynch,JJ,Moreland,RB,Donnelly-Roberts,DL,Kolasa,T.,Mikusa,JP ,麦维(J. 调节清醒大鼠阴茎勃起的中枢机制:多巴胺能系统与阿扑吗啡的勃起效应有关。 J. 药理学。 进出口。 疗法。 308,330-338。 Huang,PL,Dawson,TM,Bredt,DS,Snyder,SH,Fishman,MC,1993。 有针对性地破坏神经元型一氧化氮合酶基因。 Cell 75,1273-1286。 Huber,D.,Veinante,P.,Stoop,R.,2005。 血管加压素和催产素激发中央杏仁核中不同的神经元群。 科学308,245-248。 Hull,EM,Warner,RK,Bazzett,TJ,Eaton,RC,Thompson,JT,1989。 内侧视前区的D2 / D1比率影响雄性大鼠的交配。 J. 药理学。 进出口。 疗法。 251,422-427。 Hull,EM,Du,J.,Lorrain,DS,Matuszewich,L.,1995。 内侧视前区的细胞外多巴胺:对性交动和交配激素控制的影响。 J. 神经科学。 15,7465-7471。 Hull,EM,Meisel,RL,Sachs,BD,2002。 男性性行为。 在:Pfaff,DW,Arnold,AP,Etgen,AM,Fahrbach,SE,Rubin,RT (编辑),激素,大脑和行为。 学术出版社,纽约,pp。 3-137。 Hurlemann,R.,Patin,A.,Onur,OA,Cohen,MX,Baumgartner,T.,Metzler,S.,Dziobek,I.,Gallinat,J.,Wagner,M.,Maier,W.,Kendrick, KM,2010。 催产素可增强依赖杏仁核的,社会上强化的人类学习和情感共鸣。 J. 神经科学。 30,4999-5007。 Ivell,R.,Russel,JA,1995。 催产素:医学和研究中的细胞和分子方法。 实验医学和生物学进展,第一卷。 395. Plenum出版社,纽约。 Kelley,AE,Domesick,VB,1982。 从海马结构到大鼠伏隔核的投射分布:顺行 - 和逆行 - 辣根过氧化物酶研究。 神经科学7,2321-2335。 Kimura,Y.,Naitou,Y.,Wanibuchi,F.,Yamaguchi,T.,2008。 5-HT(2C)受体激活是阿扑吗啡,催产素和美拉诺坦-II在大鼠中的勃起效应的常见机制。 E. J. 药理学。 589,157-162。 Kondo,Y.,Sachs,BD,Sakuma,Y.,1998。 内侧杏仁核在动情雌性远程刺激引起的大鼠阴茎勃起中的重要性。 Behav。 Brain Res。 91,215-222。 Kovacs,GL,Sarnyai,Z.,Szabo,G.,1998。 催产素和成瘾:评论。 Psychoneuroendocrinology 23,945-962。 Lee,HJ,Macbeth,AH,Pagani,JH,Scott Young 3rd,W.,2009。 催产素:生命的伟大促进者。 PROG。 神经生物学。 88,127-151。 Lindvall,O.,Bjorklund,A.,Skagerberg,G.,1984。 大鼠二尖瓣和端脑中多巴胺末端系统的选择性化学演示:下丘脑神经分泌核多巴胺能神经支配的新证据。 Brain Res。 306,19-30。 Liu,YC,Salamone,JD,Sachs,BD,1997。 男性大鼠下丘脑室旁核损伤后的性反应受损。 Behav。 神经科学。 111,1361-1367。 Löber,S.,Tschammer,N.,Hübner,H.,Melis,MR,Argiolas,A.,Gmeiner,P.,2009。 作为新型生物电子等排体的azulene框架:设计有效的多巴胺D4受体配体诱导阴茎勃起。 化学。 医学。 化学。 4,325-328。 McCleskey,EW,Fox,AP,Feldman,DH,Cruz,LJ,Olivera,BM,Tsien,RW,Yoshikami,D.,1987。 _-芋螺毒素:直接和持续阻断神经元中特定类型的钙通道而非肌肉。 普罗特。 纳特。 ACAD。 科学 美国 84,4327-4331。 McKenna,KE,2000。 关于组织中枢神经系统控制阴茎勃起的一些建议。 神经科学。 Biobehav。 牧师 24,535-540。 Marson,L.,McKenna,KE,1992。 5-羟基色胺在下行抑制脊柱性反射中的作用。 进出口。 Brain Res。 88,313-318。 Marson,L.,McKenna,KE,1996。 参与控制坐骨海绵体肌和球海绵体肌的CNS细胞群:使用伪狂犬病病毒的跨神经元追踪研究。 J. 比较。 神经学。 374,161-179。 Meisel,RL,Sachs,BD,1994。 男性性行为的生理学。 在:Knobil,E.,Neil,J。 (编辑),生殖生理学,第一卷。 2,第二版。 Raven Press,纽约,pp。 3-96。 Melin,P.,Kihlstrom,JE,1963。 催产素对雄兔性行为的影响。 内分泌73,433-435。 Melis,MR,Argiolas,A.,1995a。 多巴胺和性行为。 神经科学。 Biobehav。 牧师 19,19-38。 Melis,MR,Argiolas,A.,1995b。 当注射到雄性大鼠的中枢神经系统中时,一氧化氮供体诱导阴茎勃起和打哈欠。 E. J. 药理学。 294,1-9。 Melis,MR,Argiolas,A.,2003。 中枢催产素神经传递:用于治疗致癌性勃起功能障碍的药物靶标。 CURR。 药物靶向4,55-66。 Melis,MR,Argiolas,A.,Gessa,GL,1986。 催产素诱导的打哈欠和阴茎勃起:大脑中的作用部位。 Brain Res。 398,259-265。 Melis,MR,Argiolas,A.,Gessa,GL,1987。 阿朴吗啡引起的打哈欠和阴茎勃起:大脑中的作用部位。 Brain Res。 415,98-104。 Melis,MR,Argiolas,A.,Gessa,GL,1989a。 阿扑吗啡增加大鼠的血浆催产素水平。 神经科学。 快报。 98,351-355。 Melis,MR,Argiolas,A.,Gessa,GL,1989b。 阿扑吗啡通过在中枢神经系统释放催产素诱导阴茎勃起和打哈欠的证据。 E. J. Phamacol。 164,565-570。 Melis,MR,Argiolas,A.,Stancampiano,R.,Gessa,GL,1990。 阿朴吗啡对雄性大鼠不同脑区和血浆中催产素浓度的影响。 E. J. 药理学。 182,101-107。 Melis,MR,Mauri,A.,Argiolas,A.,1994a。 阿扑吗啡和催产素诱导的阴茎勃起和在完整和阉割的雄性大鼠中打哈欠:性类固醇的作用。 神经内分泌学59,349-354。 Melis,MR,Stancampiano,R.,Argiolas,A.,1994b。 由室旁NMDA注射诱导的阴茎勃起和打哈欠由催产素介导。 药理学。 生物化学。 Behav。 48,203-207。 Melis,MR,Stancampiano,R.,Argiolas,A.,1994c。 通过NG-硝基-1-精氨酸甲酯预防阿扑吗啡和催产素诱导的阴茎勃起和打哈欠:大脑中的作用部位。 药理学。 生物化学。 Behav。 48,799-804。 Melis,MR,Succu,S.,Argiolas,A.,1996。 多巴胺受体激动剂增加下丘脑室旁核中的一氧化氮产生:与阴茎勃起和打哈欠相关。 E. J. 神经科学。 8,2056-2063。 Melis,MR,Succu,S.,Iannucci,U.,Argiolas,A.,1997。 催产素增加下丘脑室旁核中的一氧化氮产生:与阴茎勃起和打哈欠相关。 注册。 肽69,105-112。 Melis,MR,Succu,S.,Mauri,A.,Argiolas,A.,1998。 在非接触性阴茎勃起和交配期间,雄性大鼠下丘脑室旁核中的一氧化氮产生增加。 E. J. 神经科学。 10,1968-1974。 Melis,MR,Spano,MS,Succu,S.,Argiolas,A.,1999a。 催产素拮抗剂d(CH2)5Tyr(Me)2-Orn8- vasotocin减少雄性大鼠的非接触性阴茎勃起。 神经科学。 快报。 265,171-174。 Melis,MR,Succu,S.,Spano,MS,Argiolas,A.,1999b。 注射到下丘脑室旁核的吗啡可以防止非接触性勃起并损害交配:一氧化氮的参与。 E. J. 神经科学。 11,1857-1864。 Melis,MR,Spano,MS,Succu,S.,Argiolas,A.,2000。 兴奋性氨基酸,多巴胺和催产素受体拮抗剂对雄性大鼠非接触性阴茎勃起和室旁一氧化氮生成的影响。 Behav。 神经科学。 114,849-857。 Melis,MR,Succu,S.,Mascia,MS,Cortis,L.,Argiolas,A.,2003。 在性活动期间,雄性大鼠的室旁核中的细胞外多巴胺增加。 E. J. 神经科学。 17,1266-1272。 Melis,MR,Succu,S.,Mascia,MS,Argiolas,A.,2004a。 大麻性CB1受体在雄性大鼠室旁核中的拮抗作用诱导阴茎勃起。 神经科学。 快报。 359,17-20。 Melis,MR,Succu,S.,Mascia,MS,Cortis,L.,Argiolas,A.,2004b。 在性活动期间,雄性大鼠的室旁核中的细胞外兴奋性氨基酸增加:NMDA受体在勃起功能中的主要作用。 E. J. 神经科学。 19,2569-2575。 Melis,MR,Succu,S.,Mascia,MS,Argiolas,A.,2005。 PD-168,077是一种选择性多巴胺D4受体激动剂,当注射到雄性大鼠的室旁核时诱导阴茎勃起。 神经科学。 快报。 379,59-62。 Melis,MR,Succu,S.,Mascia,MS,Sanna,F.,Melis,T.,Succu,S.,Castelli,MP,Argiolas,A.,2006a。 SR 141716A诱导的雄性大鼠阴茎勃起:涉及室旁谷氨酸和一氧化氮。 神经药理学50,219-228。 Melis,MR,Succu,S.,Sanna,F.,Mascia,MS,Melis,T.,Enguehard-Gueiffier,C.,Hubner,H.,Gmenier,P.,Gueiffier,A.,Argiolas,A., 2006b。 PIP3EA和PD168077是两种选择性多巴胺D4受体激动剂,可诱导雄性大鼠阴茎勃起:大脑中的部位和作用机制。 E. J. 神经科学。 24,2021-2030。 Melis,MR,Melis,T.,Cocco,C.,Succu,S.,Sanna,F.,Pillolla,G.,Boi,A.,Ferri,GL,Argiolas,A.,2007。 注射到腹侧被盖区的催产素诱导阴茎勃起并增加伏核中的细胞外多巴胺 梅利斯,A。 Argiolas / Neuroscience and Biobehavioral评价35(2011)939-955 955和雄性大鼠下丘脑室旁核。 E. J. 神经科学。 26,1026-1035。 Melis,MR,Sanna,F.,Succu,S.,Zarone,P.,Boi,A.,Argiolas,A.,2009a。 催产素在雄性大鼠性行为的预期和完成阶段的作用。 在:Jastrow,H.,Feuerbach,D。 (编辑),催产素研究手册:合成,储存和释放,行动和药物形式。 Nova Publishers Inc,纽约,美国,pp。 109-125。 Melis,MR,Succu,S.,Sanna,F.,Boi,A.,Argiolas,A.,2009b。 注射到腹侧下托或杏仁核的后内侧皮质核中的催产素诱导阴茎勃起并增加雄性大鼠伏隔核中的细胞外多巴胺。 E. J. 神经科学。 30,1349-1357。 Melis,MR,Succu,S.,Cocco,C.,Caboni,E.,Sanna,F.,Boi,A.,Ferri,GL,Argiolas,A.,2010。 当注射到腹侧下托室时,催产素诱导阴茎勃起:一氧化氮和谷氨酸的作用。 神经药理学58,1153-1160。 Moreland,RB,Nakane,M.,Donnelly-Roberts,DL,Miller,LN,Chang,R.,Uchic,ME,Terranova,MA,Gubbins,EJ,Helfrich,RJ,Namovic,MT,El-Kouhen,OF, Masters,JN,Brioni,JD,2004。 通过Galpha(qo2)与钙通量偶联的人多巴胺D(5)样受体稳定细胞系的比较药理学。 生物化学。 药理学。 68,761-772。 Moos,F.,Freund-Mercier,MJ,Guerne,Y.,Guerne,JM,Stoeckel,ME,Richard,P.,1984。 体外巨细胞核释放催产素和加压素:催产素对其自身释放的特异性促进作用。 J. 内分泌学。 102,63-72。 Murphy,MR,Seckl,JR,Burton,S.,Checkley,SA,Lightman,SL,1987。 男性性活动期间催产素和血管加压素分泌的变化。 J. 临床。 内分泌学。 代谢。 65,738-741。 Nishimori,K.,Young,LJ,Guo,Q.,Wang,Z.,Insel,TR,Matzuk,MM,1996。 催产素是护理所必需的,但对于分娩或生殖行为不是必需的。 PROC 国家科。 ACAD。 科学 美国 93,11699-11704。 Patel,S.,Freedman,S.,Chapman,KL,Emms,F.,Fletcher,AE,Knowles,M.,Marwood,R.,Mccallister,G.,Myers,J.,Curtis,J.,Kulagowski, JJ,Leeson,PD,Ridgill,M.,Graham,M.,Matheson,S.,Rathbone,D.,Watt,AP,Bristow,LJ,Rupniak,NM,Baskin,E.,Lynch,JJ,Ragan,CI ,1997。 L 745,870的生物学特征,一种对多巴胺D4受体具有高亲和力的选择性拮抗剂。 J. 药理学。 进出口。 疗法。 283,636-647。 Pedersen,CA,Caldwell,JD,Jirikowski,GF,Insel,TR,1992。 产妇,性和社会行为中的催产素,纽约科学院年刊,第一卷。 652. 纽约科学院,纽约。 Petrovic,P.,Kalisch,R.,Singer,T.,Dolan,RJ,2008。 催产素减弱了条件面和杏仁核活性的情感评估。 J. 神经科学。 28,6607-6615。 Pfaus,JG,Everitt,BJ,1995。 性行为的精神药理学。 在:Knobil,FE,Kupfer,DJ (编辑),精神药理学:第四代进步。 Raven Press,纽约,pp。 742-758。 Rajfer,J.,Aronson,WJ,Bush,PA,Dorey,FJ,Ignarro,LJ,1992。 一氧化氮作为对非肾上腺素能,非胆碱能神经传递的反应的海绵体松弛的介质。 N. 英格兰。 J. 医学。 326,90-94。 Roeling,TAP,Van Erp,AMM,Meelis,W.,Kruk,MR,Veening,JG,1991。 NMDA注射到大鼠下丘脑室旁核的行为影响。 Brain Res。 550,220-224。 萨克斯,BD,1997。 通过发情雌性的空气气味诱发雄性大鼠的勃起。 生理学。 Behav。 62,921-924。 萨克斯,BD,2000。 勃起功能,勃起功能障碍和性唤起的生理学和分类的背景方法。 神经科学。 Biobehav。 牧师 24,541-560。 萨克斯,BD,2007。 男性性唤起的语境定义。 HORM。 Behav。 51,569-578。 Sanchez,F.,Alonso,JR,Arevalo,R.,Blanco,E.,Aijon,J.,Vazquez,R.,1994。 NADPH-心肌黄酶与血管加压素和催产素共存在大鼠下丘脑大细胞神经分泌核中。 细胞组织研究 276,31-34。 Sanna,F.,Succu,S.,Boi,A.,Melis,MR,Argiolas,A.,2009。 磷酸二酯酶型5抑制剂促进雄性大鼠的非接触性勃起:大脑中的作用部位和作用机制。 J. 性。 医学。 6,2680-2689。 Saphier,D.,Feldman,S.,1987。 室间隔和海马刺激对室旁核神经元的影响。 神经科学20,749-755。 Sato-Suzuki,I.,Kita,I.,Oguri,M.,Arita,H.,1998。 通过电和化学刺激大鼠室旁核诱导的刻板印象的打哈欠反应。 J. 神经生理学。 80,2765-2775。 舒曼,EM,麦迪逊,DV,1994。 一氧化氮和突触功能。 安。 牧师 神经科学。 17,153-183。 Snyder,SH,1992。 一氧化氮:首先是一类新的神经递质? 科学254,494-496。 Sofroniew,MV,1983。 血管加压素和催产素在哺乳动物的大脑和脊髓中。 趋势神经科学。 6,467-472。 Sokoloff,P.,Schwartz,JC,1995。 半年后新型多巴胺受体。 趋势Pharmacol。 科学 16,270-275。 Southam,E.,Garthwaite,J.,1993。 大鼠脑内一氧化氮 - 环GMP信号通路。 神经药理学32,1267-1277。 Stancampiano,R.,Melis,MR,Argiolas,A.,1994。 由5-HT1c激动剂在雄性大鼠中诱导的阴茎勃起和打哈欠:与多巴胺能和催产素传递的关系。 E. J. 药理学。 261,149-155。 Succu,S.,Mascia,MS,Sanna,F.,Melis,T.,Argiolas,A.,Melis,MR,2006。 大麻素CB1受体拮抗剂SR 141716A通过增加雄性大鼠的室旁核中的细胞外谷氨酸诱导阴茎勃起。 Behav。 Brain Res。 169,274-281。 Succu,S.,Sanna,F.,Melis,T.,Boi,A.,Argiolas,A.,Melis,MR,2007。 雄性大鼠下丘脑室旁核中的多巴胺受体的刺激诱导阴茎勃起并增加伏隔核中的细胞外多巴胺:中枢催产素的参与。 神经药理学52,1034-1043。 Succu,S.,Sanna,F.,Cocco,C.,Melis,T.,Boi,A.,Ferri,GL,Argiolas,A.,Melis,MR,2008。 当注射到雄性大鼠的腹侧被盖区时,催产素诱导阴茎勃起:一氧化氮和环状GMP的作用。 E. J. 神经科学。 28,813-821。 Tanda,G.,Pontieri,FE,Di Chiara,G.,1997。 大麻素和海洛因通过常见的mu1阿片受体机制激活中脑边缘多巴胺。 科学276,2048-2050。 Tang,Y.,Rampin,O.,Calas,A.,Facchinetti,P.,Giuliano,F.,1998。 确定的腰骶核的抗痛性和5-羟色胺能神经支配控制雄性大鼠的阴茎勃起。 神经科学82,241-254。 Theodosis,DT,1985。 在视上核中的催产素神经元上的催产素 - 免疫反应性末端突触。 自然(伦敦)313,682-684。 Tindall,JS,1974。 导致催产素释放的刺激物。 在:Geiger,SR,Knobil,E.,Sawyer,WH,Greef,R.,Astwood,EB (编辑),生理学手册。 教派。 7,Endocrinology,vol。 四。 美国生理学会,华盛顿特区,pp。 257-267。 Torres,G.,Lee,S.,Rivier,C.,1993。 大鼠下丘脑一氧化氮合酶的发生和与神经肽的共定位。 摩尔。 细胞。 神经科学。 4,155-163。 Uhl-Bronner,S.,Waltisperger,E.,Martinez-Lorenzana,G.,Condes,LM,Freund-Mercier,MJ,2005。 大鼠前脑和脊髓中催产素结合位点的性二态表达。 神经科学135,147-154。 Vaccari,C.,Lolait,SJ,Ostrowski,NL,1998。 血管加压素V1b和催产素受体信使核糖核酸在脑组织中的比较分布。 内分泌139,5015-5033。 Van Den Pol,A.,1991。 下丘脑突触前轴突中的谷氨酸和天冬氨酸免疫反应性。 J. 神经科学。 11,2087-2101。 Veronneau-Longueville,F.,Rampin,O.,Freund-Mercier,MJ,Tang,Y.,Calas,A.,Marson,L.,McKenna,KE,Stoeckel,ME,Benoit,G.,Giuliano,F。 ,1999。 控制阴茎勃起的自主神经核的催产素神经支配。 神经科学93,1437-1447。 Vincent,SR,Kimura,H.,1992。 一氧化氮合酶在大鼠脑内的组织化学定位。 神经科学46,755-784。 Wagner,CK,Clemens,LG,1993。 含有神经生理素的途径,从下丘脑的室旁核到腰椎脊髓中的性二态运动核。 J. 比较。 神经学。 336,106-116。 Winslow,JT,Insel,TR,1991。 成对雄性松鼠猴的社会地位决定了对中枢催产素给药的行为反应。 J. 神经科学。 11,2032-2038。 Wise,RA,Rompre,P.-P.,1989。 脑多巴胺和奖励。 安。 牧师 心理学。 40,191-225。 Witt,DM,Insel,TR,1994。 男性性行为激活下丘脑室旁核中催产素神经元中的c-fos样蛋白。 J. Neuroendocrinol。 6,13-18。 Witter,MP,2006。 大鼠下颌骨的连接:与柱状和层状组织有关的地形。 Behav Brain Res。 174,251-264。 伍德拉夫,GN,Foster,AC,Gill,R.,Kemp,JA,Wong,EH,Iversen,LL,1987。 MK-801与N-甲基-d-天冬氨酸受体之间的相互作用:功能性后果。 神经药理学26,903-909。 Yamashita,H.,Shigeru,O.,Inenaga,K.,Kasai,M.,Uesugi,S.,Kannan,H.,Kaneko,T.,1987。 催产素主要在体外激活大鼠视上核中的推定的催产素神经元。 Brain Res。 416,364-368。 Yells,DP,Hendricks,SE,Prendergast,MA,1992。 原发性细胞核的病变:对雄性大鼠交配行为的影响。 Brain Res。 596,73-79。 Young,WS,Shepard,E.,Amico,J.,Hennighausen,L.,LaMarca,ME,McKinney,C.,Ginns,EI,1996。 小鼠催产素的缺乏可以防止乳汁排出,但不会导致生育或分娩。 J. Neuroendocrinol。 8,847-854。 Zahran,AR,Vachon,P.,Courtois,F.,Carrier,S.,2000。 在麻醉大鼠的下丘脑室旁核中注射兴奋性氨基酸受体激动剂后,海绵体内阴茎压力增加。 J. Urol。 164,1793-1797。