COMENTÁRIOS : A seção de controvérsia deste artigo contém o seguinte:
Existem diversos estudos baseados em eletrofisiologia, realizados pelo grupo de Prause, que fornecem algumas evidências de que o desejo sexual, e não a hipersexualidade, prediz a autorregulação da excitação sexual [92] . Esses pesquisadores sugerem, em outro trabalho, que indivíduos que relataram problemas na regulação da visualização de estímulos sexuais visuais (ESV) e que também relataram maior desejo sexual apresentaram potenciais positivos tardios (PPT) mais baixos em resposta aos ESV. Os autores propõem que esse padrão parece ser diferente dos modelos de dependência de substâncias [93].
Os dois artigos de EEG do “grupo de Prause” foram amplamente criticados em periódicos revisados por pares e por outros (incluindo YBOP). Na realidade, as descobertas em ambos os artigos são consistentes com o modelo de dependência, apesar das conclusões duvidosas de seus autores. Para o estudo EEG de 2013, consulte:
- Nada se correlaciona com nada no novo estudo de pornografia do SPAN Lab (2013)
- Crítica revisada por pares: 'Alto desejo' ou 'apenas' um vício? Uma resposta para Steele et al. (2014) por Donald L. Hilton, Jr., MD,
- Crítica revisada por pares: “Neurociência do vício em pornografia na Internet: uma revisão e atualização” (2015)
- Análise revisada por pares: “Neural Correlates of Sexual Cue Reactivity in Individuals with and without Compulsive Sexual Behaviors” (2014)
Para o estudo 2015 EEG, consulte:
- Crítica de “Modulação de Potenciais Positivos Tardios por Imagens Sexuais em Usuários Problemáticos e Controles Inconsistentes com 'Vício em Pornografia' (2015)”
- Crítica revisada por pares: Neurociência do vício em pornografia na Internet: uma revisão e atualização (2015)
Não seria ótimo se os pesquisadores realmente lessem os estudos que citam, em vez de simplesmente repetir as manchetes do autor principal?
LINK PARA PUBLICAÇÃO
Publicado em: 12 de outubro de 2015 (ver histórico)
DOI: 10.7759/cureus.348
Cite este artigo como: Blum K, Badgaiyan RD, Gold MS (12 de outubro de 2015) Hipersexualidade, Vício e Abstinência: Fenomenologia, Neurogenética e Epigenética. Cureus 7(10): e348. doi:10.7759/cureus.348
Sumário
A hipersexualidade foi definida como um aumento anormal da atividade sexual. Estudos epidemiológicos e clínicos demonstraram que esta condição não parafílica consiste em comportamentos e transtornos sexuais “excessivos” acompanhados de sofrimento pessoal e morbidade social e médica. É um tópico muito polêmico e político em termos de como melhor categorizá-lo como semelhante ou não a comportamentos de dependência, incluindo abuso de substâncias. O transtorno hipersexual é conceituado como um transtorno do desejo sexual não parafílico com impulsividade. As perspectivas fisiopatológicas incluem desregulação da excitação e desejo sexual, impulsividade sexual e compulsividade sexual. O núcleo accumbens, situado dentro do estriado ventral, medeia os efeitos reforçadores das drogas de abuso, como cocaína, álcool, nicotina e comida, bem como música. Na verdade, acredita-se que essa estrutura ordena comportamentos eliciados por estímulos de incentivo. Esses comportamentos incluem recompensas naturais como alimentação, bebida, comportamento sexual e locomoção exploratória. Uma regra essencial do reforço positivo é que as respostas motoras aumentarão em magnitude e vigor se forem seguidas por um evento gratificante. Aqui, estamos formulando a hipótese de que existe um mecanismo de ação comum (MOA) para os poderosos efeitos que as drogas, a música, a comida e o sexo têm na motivação humana. O impulso humano para os três comportamentos motivacionais necessários “fome, sede e sexo” pode ter antecedentes genéticos moleculares comuns que, se prejudicados, levam a comportamentos aberrantes. Nossa hipótese é que, com base em uma infinidade de suporte científico, a atividade hipersexual é de fato como drogas, comida e música que ativam o circuito de recompensa mesolímbico do cérebro. Além disso, o gene dopaminérgico e possivelmente outros polimorfismos de genes relacionados a neurotransmissores candidatos afetam os resultados comportamentais hedônicos e anedônicos. Pouco se sabe sobre a genética e a epigenética da hipersexualidade na literatura atual. No entanto, antecipamos que estudos futuros baseados em avaliações com instrumentos clínicos combinados com genotipagem de viciados em sexo fornecerão evidências para agrupamento específico de tipologias sexuais com associações polimórficas. Tem havido alguns estudos usando técnicas eletrofisiológicas que não apóiam a visão de que a hipersexualidade é de fato semelhante ao abuso de substâncias e outros vícios comportamentais. Os autores também estão encorajando cientistas clínicos e acadêmicos a embarcar em pesquisas usando ferramentas de neuroimagem para examinar agentes agonistas dopaminérgicos naturais direcionados a polimorfismos de genes específicos para “normalizar” o comportamento hipersexual.
Introdução e Histórico
Certamente, o comportamento hipersexual tem sido documentado em contextos clínicos e de pesquisa na última década [1] . Benjamin Rush, um médico e um dos pais fundadores dos Estados Unidos, documentou clinicamente comportamentos sexuais excessivos [2]. Richard von Krafft-Ebing, um sexólogo pioneiro da Europa Ocidental do século XIX, e Hirshfeld, em 1948, deram continuidade ao trabalho [3-4] . A premissa básica desses pesquisadores sugeria que a hipersexualidade constituía comportamento(s) sexual(is) socialmente desviante(s) persistente(s) em homens e mulheres, sendo o apetite sexual excessivo mal-adaptativo. Em 1975, Stroller caracterizou a condição como Don Juanismo [5] . Em 1969, Allen sugeriu satiríase para homens e ninfomania para mulheres, corroborado por Ellis e Sagarin [6-7] . Embora a hipersexualidade não esteja incluída como um diagnóstico psiquiátrico no DSM, o trabalho de vários investigadores contemporâneos, incluindo Kafka, Reid, Bancroft, os seus colegas e a inclinação da Organização Mundial da Saúde podem levar à inclusão desta condição como uma entidade diagnóstica separada [8-11].
Revisão
Metodologia de Literatura
O banco de dados Medline, de 12 de julho de 2015, foi usado para realizar uma pesquisa bibliográfica baseada na Internet. Os seguintes termos foram incluídos: hipersexual (170), hipersexualidade (479), vício sexual (1,652), viciado em sexo (1,842), impulsividade sexual (989), sexual compulsivo (946), sexo compulsivo (1,512), compulsão sexual (782 ), transtorno relacionado à parafilia (234) e sexual excessivo (857). Uma vez que este artigo é uma breve revisão e não uma meta-análise, ele se baseia em uma seleção representativa desses estudos que são relevantes para os subtópicos abordados. A não inclusão de nenhum estudo específico não nega sua importância para a área. Compreensivelmente, há aqueles que não concordam com o conceito de que o vício em sexo é de fato um transtorno real e podem até ter evidências para mostrar que estão em terreno sólido. No entanto, argumentamos que há ampla evidência para propor que o vício sexual existe e estudos envolvendo neuroimagem, neurogenética e até mesmo epigenética apóiam a noção de que o vício sexual compulsivo, assim como a hipersexualidade, podem ser considerados um transtorno aditivo. Embora estejamos cientes dessa discrepância, submetemos, respectivamente, nosso ponto de vista para gerar mais escrutínio científico e não para dissipar a retórica científica sobre este importante assunto. Para lançar luz adicional sobre o assunto, pesquisamos na literatura algum consenso. Em 17 de agosto de 2015, pesquisamos o PUBMED Central usando o seguinte termo - “Sexo é um vício real?” e recuperou 46 artigos.
Definição de dependência sexual
O vício sexual é definido como qualquer comportamento sexual compulsivo que interfere na vida normal e causa estresse severo na família, amigos, entes queridos e no ambiente de trabalho. O vício sexual tem sido chamado de dependência sexual, hipersexualidade e compulsividade sexual. Seja qual for o nome, trata-se de um comportamento compulsivo que domina completamente a vida do viciado. Os viciados em sexo priorizam o sexo em detrimento da família, dos amigos e do trabalho. O sexo torna-se o princípio organizador da vida do viciado. Eles estão dispostos a sacrificar o que mais prezam para preservar e continuar seu comportamento prejudicial [12] . O desejo hipersexual foi definido como um desejo baseado na avaliação da frequência do comportamento sexual ao longo da vida e no tempo gasto em fantasias sexuais associadas. Em homens, a avaliação do desejo hipersexual foi definida por Kafka e Hannen como o período mais longo e sustentado (duração mínima de seis meses) de comportamento sexual persistentemente praticado (total de relações sexuais/semana após os 15 anos de idade). Na verdade, um histórico longitudinal de desejo hipersexual, definido operacionalmente como acima, foi identificado em 72-80% dos homens que procuram tratamento para parafilias e distúrbios relacionados à parafilia [13].
Hipersexualidade e diferenças de gênero
Está bem estabelecido que na comunidade sexual humana e na literatura o desejo sexual é capitulado como a presença de fantasias sexuais, atividades ou desejos, e a motivação do ser humano para se envolver em comportamentos sexuais. Existem sugestões relevantes internas e externas . Os proponentes da teoria evolucionista argumentam que homens e mulheres têm diferentes agendas quando se trata de atividade sexual . Numerosos estudos revelam diferenças distintas entre homens e mulheres. Os machos aumentaram a fantasia sexual , aumento da frequência de masturbação , maior propensão para a excitação sexual visual gerada externamente atitudes permissivas em relação ao sexo casual , facilidade de excitação e motivação intrínseca . Em contraste, as mulheres mostram uma paisagem sexual diferente, com motivação sexual, excitação sexual e comportamento sexual sendo moldado por fatores evolutivos. e maior investimento biológico, emocional e temporal na reprodução e educação infantil . As fêmeas são menos vulneráveis à hipersexualidade e adaptado para fomentar relacionamentos afiliativos e compromisso de longo prazo com os parceiros . Enquanto se estima que a dependência sexual aflige até 3% a 6% da população, a compreensão clara dos antecedentes neurobiológicos é limitada bem como avaliações clínicas . Encorajamos leituras adicionais sobre compulsão sexual, apego e orientação sexual e diferenças de gênero nas respostas aos estímulos sexuais [29-30].
É importante notar que Kafka e Hennen [13] descobriram que a idade média de início do comportamento hipersexual persistente era de 18.7 ± 7.2 anos em homens sexualmente ativos e que a faixa etária de início do comportamento hipersexual era de 7 a 46 anos. A duração média dessa frequência mais alta e consistente de comportamento sexual apetitivo foi de 12.3 ± 10.1 anos. No entanto, a idade média desses homens sexualmente ativos com hipersexualidade que buscaram tratamento foi de 37 ± 9 anos. Hanson et al. também avaliaram a hipersexualidade em infratores e descobriram que infratores de baixo risco apresentavam taxas de reincidência menores do que infratores de alto risco [31].
Hipersexualidade e abuso de substâncias co-mórbidas
Existe uma alta comorbidade entre o transtorno de hipersexualidade e outros vícios, como o transtorno por uso de substâncias [32-33] . Especificamente, Garcia e Thibaut propuseram que a fenomenologia do transtorno sexual não parafílico excessivo seja classificada como um comportamento aditivo, em vez de um transtorno obsessivo-compulsivo ou um transtorno do controle de impulsos [34] . Eles apontam corretamente que os critérios são bastante próximos aos dos transtornos aditivos, conforme também proposto por outros [35] . Esses pesquisadores forneceram o ímpeto para a continuidade das pesquisas nessa área e para a possível inclusão futura do transtorno de hipersexualidade no DSM-6. Drogas de abuso, rock 'n' roll e sexo são concomitantes, e festivais inteiros foram construídos em torno dessas combinações, desde Woodstock até os dias atuais.
A literatura revela que usuários de metanfetamina relatam que essa droga estimulante aumenta o desejo sexual, especialmente o comportamento de risco. No entanto, a anfetamina demonstrou reduzir a atividade sexual de ratas. Com isso em mente, Holder et al. avaliaram o papel da metanfetamina em ratas [36] . Eles descobriram que, ao contrário, a metanfetamina facilitou o comportamento sexual feminino, e esse efeito se deve ao aumento da transmissão dopaminérgica e até mesmo à possível neurotransmissão devido à combinação de hormônios ovarianos e metanfetamina. Especificamente, eles encontraram um aumento da motivação sexual associado à ativação da atividade neuronal na amígdala medial e no núcleo ventromedial do hipotálamo.
Além disso, cientistas da Holanda estudaram a comorbidade do abuso de substâncias em swingers autodeclarados [37] . Neste estudo, Spauwen et al. concluíram que 79% dos swingers relataram uso recreativo de drogas (incluindo álcool e medicamentos para disfunção erétil); 46% deles relataram uso de múltiplas drogas. De fato, o uso recreativo de drogas (excluindo álcool e medicamentos para disfunção erétil) foi significativamente associado a comportamentos sexuais de alto risco em homens e mulheres. Além disso, o uso de drogas foi associado independentemente a infecções sexualmente transmissíveis (ISTs) em swingers do sexo feminino, especialmente aquelas que participam de sexo em grupo.
Castelo-Branco et al. relataram que mulheres jovens adultas percebem a sexualidade como uma parte importante de suas vidas, mas não como uma preocupação primária (77.6%) [38] . Elas também relataram que o álcool remove as barreiras para o sexo (62.3%). É importante ressaltar que elas também descobriram que o abuso de álcool era uma variável preditiva para o aumento de comportamentos de risco, independentemente da idade da mulher.
É importante notar que Jia, et al. relataram comportamentos sexuais perigosos entre usuários de psicoestimulantes e heroína, incluindo relações sexuais múltiplas, parceiros sexuais casuais, parceiros homossexuais e nunca ou ocasionalmente praticar sexo seguro [39].
Nosso principal inquilino é que as drogas, como a metanfetamina, a cocaína, a heroína e o álcool, podem estimular o desejo sexual em não-dependentes. Em viciados, é bem diferente; as mesmas drogas podem causar anedonia de forma crônica. No entanto, pós-dependência durante a fase de recuperação em muitos casos foram observados comportamentos semelhantes aos afrodisíacos.
Hipersexualidade e retirada
Uma pesquisa no PubMed (7-19-15) usando o termo “hipersexualidade e sintomas de abstinência” resultou em apenas cinco artigos, nenhum dos quais descreveu “sintomatologia de abstinência”. No entanto, uma busca alternativa usando os termos “sintomas de abstinência de alta atividade sexual” resultou em 25 artigos listados.
Adictos em recuperação relatam aumento na ingestão de alimentos e no apetite por certos alimentos, além de abuso de cigarros durante períodos prolongados de abstinência. O ganho de peso também foi demonstrado e documentado em animais e humanos em abstinência recente e prolongada [39] . Bruijnzeel fez a interessante observação de que a abstinência aguda de opiáceos pode resultar em orgasmos espontâneos [40] . É importante ressaltar que, no artigo, Bruijnzeel propôs que a sintomatologia da abstinência de drogas e, possivelmente, a atividade sexual intensa crônica podem ser devidas à função descontrolada da sinalização do receptor opioide kappa, que inibe a liberação de dopamina enquanto aumenta a norepinefrina nos circuitos de recompensa do cérebro.
Os artigos na literatura sofreram de falta de rigor quanto à retirada aguda e prolongada e abstinência confirmada por exame de urina. Os programas de tratamento clínico passaram cada vez mais do tratamento de ambos os sexos para o isolamento dos dois sexos, proporcionando programas de tratamento específicos de gênero. Eles também oferecem educação para lidar com o aumento precoce e prolongado de interesse e atividade sexual e a relação de recuperação com alimentos e alimentação excessiva.
Alguns pesquisadores relataram sintomas de abstinência induzidos pela hipersexualidade, com diferentes graus de gravidade e comorbidade com abuso de substâncias [41-45] . Como resultado desta busca, não encontramos nenhum artigo que descrevesse sintomas de abstinência associados à abstinência de relações sexuais ativas. A maioria dos artigos citados abordava os efeitos da abstinência de drogas de abuso, como opioides, nicotina, anfetaminas e cocaína, que podem prejudicar a atividade sexual.
Hipersexualidade e neurogenética
Uma busca no PubMed (19/7/15) revelou apenas seis artigos listados usando o termo “genes e hipersexualidade”, focando principalmente em artigos relacionados à síndrome de Kleine-Levin (SKL), uma doença muito rara na qual a hipersexualidade pode durar até 27 anos. Em um estudo, descobriu-se que um HLA-DQBl responsivo ao sistema imunológico, DQBl *0602, foi detectado em quantidades significativas em pacientes com SKL e poderia elevar o risco de SKL [46-47].
No entanto, quando usamos os termos “atividade sexual e genes”, 2,826 artigos foram listados, e fornecemos uma breve sinopse de alguns aspectos neurogenéticos importantes. É nossa hipótese que os comportamentos hedônicos e anedônicos são resultados em parte dos alelos de risco de um indivíduo para esses comportamentos e que o tratamento consiste em direcionar apropriadamente esses polimorfismos identificados. Além disso, a resposta ao tratamento também depende desses alelos de risco e fornece uma base lógica importante para testes farmacogenéticos e soluções farmacogenômicas / nutrigenômicas.
Após a controversa descoberta inicial de Blum et al. em 1990, que apresentou as primeiras evidências de uma associação entre o alelo A1 do DRD2 e o alcoolismo grave, foram publicados 3,938 artigos no PubMed (19/07/2015) [48] . Os estudos abrangem o polimorfismo do gene psiquiátrico, o alelo A1 do DRD2, e os comportamentos e a fisiologia associados. No entanto, há uma escassez de dados que relacionem a atividade sexual a este e a outros genes relacionados, apesar das inúmeras evidências de ativação mesolímbica, especialmente nas vias dopaminérgicas e nos loci neuronais relacionados a estímulos e atividades sexuais. É importante notar que Blum e Noble classificaram corretamente o gene DRD2 como um gene de recompensa generalizado, responsável por todos os comportamentos da síndrome de deficiência de recompensa (SDR). De fato, usando a análise do teorema de Bayes, os portadores do alelo A1 do Taq terão, ao longo da vida, 74% de chance de apresentar um ou mais comportamentos da síndrome de deficiência de recompensa (SDR) [49].
A primeira associação entre qualquer polimorfismo genético e atividade sexual só ocorreu em 1999, quando Miller et al. avaliaram alguns genes dopaminérgicos [50] . A principal conclusão é que o sistema dopaminérgico no cérebro parece desempenhar um papel importante na regulação do comportamento sexual. A relação entre os genes dos receptores de dopamina D1, D2 e D4 e a idade da primeira relação sexual (IPS) foi examinada em uma amostra de 414 homens e mulheres não hispânicos, euro-americanos. Observou-se uma associação significativa entre um alelo DRD2 e a IPS, e uma associação ainda mais forte quando o alelo DRD2 interagiu com um alelo DRD1. Um modelo de regressão restrita foi construído para prever a IPS, utilizando o sexo e um grupo de nove variáveis psicossociais como preditores. A adição dos preditores DRD2 e DRD2-por-DRD1 a esse modelo aumentou a variância explicada em 23% e 55%, respectivamente. O fato de essas descobertas sugerirem uma associação mais forte entre homens do que entre mulheres está de acordo com o trabalho recente de outros que mostram uma resposta maior a estímulos sexuais em homens do que em mulheres [51] . Então talvez “os homens sejam de Marte e as mulheres de Vênus” e isso pode até ser verdade para o abuso de cocaína [52].
Especificamente, estudos pré-clínicos e clínicos demonstraram padrões dimórficos sexuais nas respostas comportamentais à cocaína em todas as fases do processo de dependência (indução, manutenção e recaída). Assim, um quadro claro está emergindo, sugerindo que existe uma base biológica para as diferenças específicas de sexo na dependência de cocaína. Essas diferenças resultam da regulação distinta do SNC pelos hormônios gonadais masculinos e femininos e podem ser previstas pela presença de polimorfismos no gene DRD2 [53] . Além disso, sabe-se que as associações genéticas entre COMT e vários fenótipos psiquiátricos frequentemente apresentam diferenças entre homens e mulheres. Isso inclui o polimorfismo funcional Val(158)Met no COMT, que está associado ao transtorno obsessivo-compulsivo em homens e a fenótipos de ansiedade em mulheres. Adicionalmente, o polimorfismo Val(158)Met no COMT tem um impacto maior na função cognitiva em meninos do que em meninas [54].
Miller et al. não encontraram associação entre os polimorfismos ligados ao gene DRD4 e a idade da primeira relação sexual [50] . No entanto, outros encontraram uma associação significativa em certos grupos étnicos. Especificamente, a análise dos polimorfismos em DRD4 indica que aqueles com qualquer genótipo -3R apresentaram um risco de primeira relação sexual maior do que aqueles com outros genótipos (ou qualquer genótipo -4R) em todas as etnias (n = 2,552). Curiosamente, o risco de primeira relação sexual não difere entre os dois genótipos na amostra afro-americana, levantando a questão da educação cultural [55].
A experiência sexual, assim como o uso repetido de drogas, produz alterações a longo prazo, incluindo a sensibilização do núcleo accumbens (NAc) e do estriado dorsal. Bradley et al., utilizando análise de microarrays em hamsters, descobriram pela primeira vez que a experiência sexual, tanto em animais machos quanto fêmeas, regula diferencialmente a expressão de mRNA de uma série de genes no NAc [56] . Eles constataram que, em comparação com animais sexualmente inexperientes, hamsters sexualmente experientes que receberam um macho como estímulo na 7ª semana apresentaram um aumento na expressão de um grande número de genes. Por outro lado, hamsters fêmeas sexualmente experientes que não receberam um macho como estímulo na 7ª semana apresentaram uma redução na expressão de muitos genes. De acordo com os autores, este primeiro perfilamento genético em hamsters fêmeas pode fornecer informações sobre os mecanismos pelos quais tanto comportamentos (sexo) quanto drogas de abuso induzem alterações a longo prazo nas vias dopaminérgicas mesolímbicas e nigroestriatais.
Eletrodos bipolares, implantados bilateralmente no hipotálamo lateral e na área tegmental nigraventral da substância negra, foram usados estereotaxicamente para fornecer experiências crônicas de recompensa autoestimulatória semelhantes ao comportamento sexual. Observou-se que esse tipo de estimulação induz um aumento significativo no número de sinapses na região CA3 do hipocampo e na camada molecular do córtex motor em ratos. Em essência, a estimulação cerebral crônica induziu potenciação de longo prazo (PLP), que é conhecida por aumentar novas conexões sinápticas [57] . Uma única exposição à cocaína em animais ingênuos é suficiente para desencadear alterações sustentadas nas sinapses glutamatérgicas da área tegmental ventral (ATV) que se assemelham à PLP dependente da atividade em outras regiões cerebrais. Essa PLP induzida por cocaína parece ser mediada pela ativação dos receptores de N-metil-D-aspartato (NMDA) pelo receptor de dopamina D5 e requer síntese proteica [58] , corroborando mais uma vez nossa premissa aqui proposta de que drogas e sexo podem ter substratos neuroquímicos comuns.
Pesquisas empíricas revelaram uma relação positiva entre o número de parceiros sexuais e o envolvimento em comportamentos antissociais [59] . A maioria das tentativas de explicar essa associação adotou uma perspectiva evolucionista. Sob essa perspectiva, as mesmas características, como impulsividade, miopia e agressividade, que estão relacionadas a um grande número de parceiros sexuais, também estão relacionadas ao envolvimento criminal. No entanto, há também razões para acreditar que a covariância entre parceiros sexuais e comportamentos criminosos pode ser parcialmente explicada por uma via genética comum, na qual genes relacionados ao número de parceiros sexuais também estão relacionados à conduta antissocial. Utilizando o raciocínio descrito acima, Beaver et al. encontraram uma forte associação positiva entre parceiros sexuais e comportamento antissocial, e polimorfismos do gene transportador de dopamina (DAT1) explicam a variação tanto no número de parceiros sexuais quanto na conduta criminosa em homens [59] . O efeito polimórfico do gene DAT1 e o número de parceiros sexuais podem ser devidos a uma associação encontrada entre certos polimorfismos e a ejaculação precoce masculina. Os portadores do genótipo 1OR/1OR apresentaram pontuações indicando um limiar mais baixo para ejaculação em cada um dos indicadores, em comparação com o grupo de portadores combinados 9R9R/9R10R (9R com maior atividade e menor disponibilidade de dopamina) [60] . Polimorfismos do gene DAT1, especificamente o genótipo 10R/10R, foram encontrados em jovens delinquentes que frequentavam a Brown School (San Marcos, Texas) por comportamentos agressivos patológicos, incluindo comportamento antissocial [61] . Uma correlação positiva entre os polimorfismos DRD2 e DAT1 foi observada com violência patológica em adolescentes em um ensaio clínico cego. Além disso, embora inicialmente concebido como resultado da imitação por pares de jovens com início na infância ou persistência ao longo da vida, há evidências crescentes de estudos com gêmeos de que o comportamento antissocial com início na adolescência ou limitado à adolescência também pode ser influenciado geneticamente. Burt e Mikolajewski não apenas confirmaram esses achados com o gene DATl, mas também os estenderam para incluir a variante His452Tyr do gene que codifica o receptor 5-HT2A [62] . Mais recentemente, Jozkow et al. relataram uma associação entre a dimensão sexual dos sintomas do envelhecimento masculino (AMS) e variantes genéticas do 5-HTRlB G861C [63] . Além disso, Sales et al. encontraram, por meio de análise de regressão logística multivariável, uma interação entre abuso e o grupo 5-HTTLPR, na qual houve uma associação significativa com o status de não mudança, juntamente com os escores de frequência de comunicação com o parceiro no acompanhamento [64]. Ter um histórico de abuso foi significativamente associado a maiores chances de não mudança no uso de preservativo após a intervenção apenas para aqueles com o alelo s.
Sabe-se que polimorfismos em regiões não codificantes do gene do receptor de vasopressina Ia (Avpr Ia) estão ligados a características socioemocionais em humanos, chimpanzés e ratos-do-campo, e podem ser devidos a uma variação específica do local na expressão gênica. De acordo com Barrett et al., o rato-do-campo da pradaria, socialmente monogâmico, oferece uma oportunidade única para estudar a neurobiologia da monogamia [65] . De fato, a sinalização do receptor de vasopressina Ia (VlaR) é necessária para a formação do vínculo de casal em machos. Curiosamente, ratos-do-campo da pradaria sociais exibem maior ligação do VlaR no pálido ventral, responsável pelo processamento da recompensa, do que ratos-do-campo associals do mesmo gênero. Barrett et al. descobriram que a redução da densidade de VlaR no pálido resultou em um comprometimento significativo na preferência por uma parceira acasalada e em uma redução do comportamento semelhante à ansiedade na idade adulta [65] . Outro trabalho de Garcia et al. revelou que indivíduos com pelo menos um alelo de 7 repetições (7R+) do DRD4 relatam uma taxa categórica maior de comportamento sexual promíscuo, incluindo já ter tido um “caso de uma noite”, e relatam um aumento de mais de 50% nos casos de infidelidade sexual [66].
É importante destacar que Daw e Guo relataram que indivíduos portadores dos genótipos DRD2*A1/A2, DRD2*A2/A2, DAT1*9R/10R e MAOA*2R/ estão associados a maiores chances de relações sexuais desprotegidas do que outros genótipos nesses loci [67] . As associações com DRD2 se aplicam tanto a homens quanto a mulheres, enquanto as outras associações se aplicam apenas a mulheres. Finalmente, Emanuele et al. relataram uma associação significativa entre os genótipos DRD2 TaqI A e “Eros” (um estilo de amor caracterizado por uma tendência a desenvolver experiências emocionais intensas com base na atração física pelo parceiro), bem como entre o polimorfismo C516T 5HT2A e “mania” (um apego romântico possessivo e dependente, caracterizado por emoções autodestrutivas) [68].
Epigenética e atividade sexual
Uma revisão da literatura revela que diversos artigos recentes destacam a importância dos efeitos epigenéticos na atividade sexual. Por exemplo, Matsuda revisou as alterações epigenéticas do receptor de estrogênio alfa (ERα) e sua influência no comportamento sociosexual [69] . De fato, a alteração da atividade do gene ERα mediada por mecanismos epigenéticos, como modificações de histonas e metilação do DNA, altera os comportamentos sexuais. Em relação à homossexualidade, Rice et al. desenvolveram um modelo que pode explicar a canalização (conversão) do desenvolvimento sexual homossexual [70] . Eles explicam que esse modelo se baseia em marcas epigenéticas estabelecidas em resposta ao cariótipo XX versus XY em células-tronco embrionárias. De acordo com essas marcas, a sensibilidade à testosterona aumenta em fetos XY e diminui em fetos XX, canalizando assim o desenvolvimento sexual. Postula-se que um subconjunto dessas marcas epigenéticas de conversão quantitativamente pode ser transmitido transgeneticamente e levar ao mosaicismo para o desenvolvimento sexual em descendentes de sexos opostos – o fenótipo homossexual.
No rato-do-campo (Microtus ochrogaster), uma espécie socialmente monogâmica, o acasalamento induz laços duradouros que são iniciados pela formação de preferências por parceiros e regulados por uma variedade de neurotransmissores, incluindo oxitocina, vasopressina e dopamina. Trabalhos de Gundersen [71] e Wang et al. [72] sugerem que a histona desacetilase pode facilitar a formação de parceiros em fêmeas de rato-do-campo, o que pode ter relevância para humanos. Especificamente, Wang et al. descobriram que os inibidores da histona desacetilase – butirato de sódio e tricostatina A (TSA) – aumentaram a formação de preferências por parceiros em fêmeas de rato-do-campo [72] . Essa formação de preferências por parceiros foi associada a uma regulação positiva do receptor de oxitocina (OTR, oxtr) e do receptor V1a da vasopressina (VlaR, avprla) no núcleo accumbens (NAc), por meio de um aumento na acetilação de histonas em seus respectivos promotores.
Há um crescente interesse em evidências que indicam que as fêmeas se envolvem ativamente na poliandria, seja para evitar incompatibilidade genética, seja para favorecer a paternidade de machos geneticamente superiores. Existe a possibilidade de que a seleção de machos com aptidão superior se deva a efeitos epigenéticos. De acordo com Zeh e Zeh, diferentemente da variação baseada na sequência de DNA, a variação epigenética pode ser fortemente influenciada por efeitos ambientais e estocásticos vivenciados durante a vida de um indivíduo [73] . Eles sugerem que a variação epigenética pode ser importante para a seleção sexual pós-copulatória e pode explicar as descobertas que relacionam a capacidade competitiva dos espermatozoides à aptidão da prole.
Evolução genética e memética: procriação humana
Eysenck propôs uma correlação positiva entre extroversão e comportamento sexual intensificado, e entre neuroticismo e problemas no comportamento sexual (comportamento antissocial). Um estudo anterior com pessoas casadas não demonstrou nenhuma dessas correlações. Foi levantada a hipótese de que essa conexão existe apenas para pessoas solteiras que não estão em relacionamentos duradouros, pois a qualidade do relacionamento determina a interação sexual. Em uma amostra de homens jovens solteiros, houve uma correlação positiva entre extroversão e itens nos quais a pessoa descreveu atividade sexual anterior com mais indivíduos e com maior frequência. Nenhuma correlação foi encontrada com neuroticismo. Também foram observadas correlações leves com outras escalas de personalidade e atitudes sociais. Devido à correlação com uma escala de personalidade de atuação, os resultados foram interpretados sob uma perspectiva sociopsicológica. Na sociedade atual, espera-se que o jovem tome a iniciativa em uma interação sexual, algo que um jovem extrovertido pode realizar melhor do que um introvertido [74] . Essa perspectiva está em consonância direta com a ideia de Richard Brodie sobre os genes egoístas da mente [75] . Do ponto de vista do DNA, é claro que os antropólogos concordariam que “ainda estamos aqui por um único motivo: para nos reproduzir e multiplicar”. Embora os avanços evolutivos sejam lentos, cerca de um passo a cada 20 anos, em comparação com a “evolução dos memes, em que uma ideia sofre mutações no tempo que leva para ler uma frase”, nossos cérebros não têm nada a ver com a evolução genética, exceto na medida em que esta se relaciona com o fato de pessoas inteligentes terem menos filhos. De fato, se existirem genes que conferem às pessoas a tendência de adotar memes que limitam o número de descendentes, eles desaparecerão em algumas gerações, dando lugar a genes que conferem às pessoas a tendência de ter filhos. Embora um tanto controverso, infelizmente, diversos estudos sugerem que o Homo sapiens, nos últimos 42,000 anos, reduziu seus QIs devido ao acasalamento seletivo [76].
Extraordinariamente, descobriu-se que, como a extroversão está ligada ao aumento da atividade sexual, especialmente em homens, geneticistas quantitativos estimam que a hereditariedade da personalidade extrovertida seja de cerca de 40 a 60%. Smillie e colaboradores estudaram e descobriram que uma cópia do alelo A1 do gene DRD2 estava associada a uma extroversão significativamente maior [77] . Essa associação levanta uma questão interessante em termos de procriação humana. Comings sugeriu que, devido ao seu efeito marcante no comportamento reprodutivo, nos distúrbios de aprendizagem e em outros distúrbios impulsivos, compulsivos, agressivos e aditivos, os portadores do alelo A1 do DRD2 têm o potencial de causar alterações progressivas e permanentes na frequência do alelo A1 do DRD2, “levando ao colapso genético da espécie” [78].
Em seu livro, Comings apresenta evidências de que pessoas com comportamentos aditivos e disruptivos têm filhos mais cedo, e isso impacta a seleção de genes de dependência, como o alelo A1 do DRD2 [79] . Ele sugere que indivíduos portadores desse alelo de risco disruptivo terão filhos, digamos, aos 20 anos de idade, enquanto indivíduos sem esse alelo terão filhos aos 25 anos. Como resultado, o gene mutante se reproduzirá mais rapidamente, ou seja, a cada 20 anos, enquanto a forma normal do gene se reproduzirá a cada 25 anos. A proporção de 25/20 é 1.25. Assim, a taxa na qual um gene que possui uma vantagem seletiva de 1.25 vezes aumentará em frequência de geração para geração. Uma diferença de cinco anos na idade das mães ou dos pais quando têm seus primeiros filhos é suficiente para resultar em uma seleção significativa e relativamente rápida de genes carregados pelo grupo que inicia a maternidade em uma idade mais precoce. Aumentos em alguns comportamentos disruptivos relacionados à síndrome de abstinência (SAR) foram documentados de 1955 até o presente. Esses aumentos incluem a síndrome do comportamento adolescente (drogas, sexo, gravidez na adolescência e comportamentos delinquentes, tabagismo), transtorno de conduta, criminalidade, abuso de drogas, alcoolismo, comportamento sexual desprotegido, mães solteiras, assistência social, expulsão escolar e evasão escolar, bem como uma diminuição concomitante no QI [80] . Esses resultados são baseados no Estudo de Berkeley, que utiliza dados longitudinais dos Estudos de Saúde e Desenvolvimento Infantil e das Pesquisas Longitudinais Nacionais da Juventude (NLYS) [81] . Utilizando essas informações, Comings previu que, de 1955 a 2015, haverá uma duplicação da frequência, por exemplo, do alelo A1 do gene DRD2, aumentando, portanto, a prevalência de comportamentos da Síndrome de Regressão ao Desenvolvimento (RDS), incluindo relações sexuais precoces [50] . Encorajamos um acompanhamento dessa interessante previsão.
Apesar de algum desacordo, estamos propondo o transtorno de hipersexualidade como um subtipo de características de compartilhamento de RDS com comportamentos dependentes de substâncias e não-substâncias, sendo sua expressão clínica parcialmente afetada tanto pela genética quanto pela epigenética. Embora não tenha sido testado até o momento, também propomos tratamentos assistidos por medicação (MAT) a curto prazo, aprovados pela FDA, que favorecem o bloqueio da função da dopamina, seguida pela ativação suave das vias dopaminérgicas, levando à homeostase da dopamina em longo prazo. Este último poderia ser realizado por algumas modalidades que podem ajudar na recuperação.
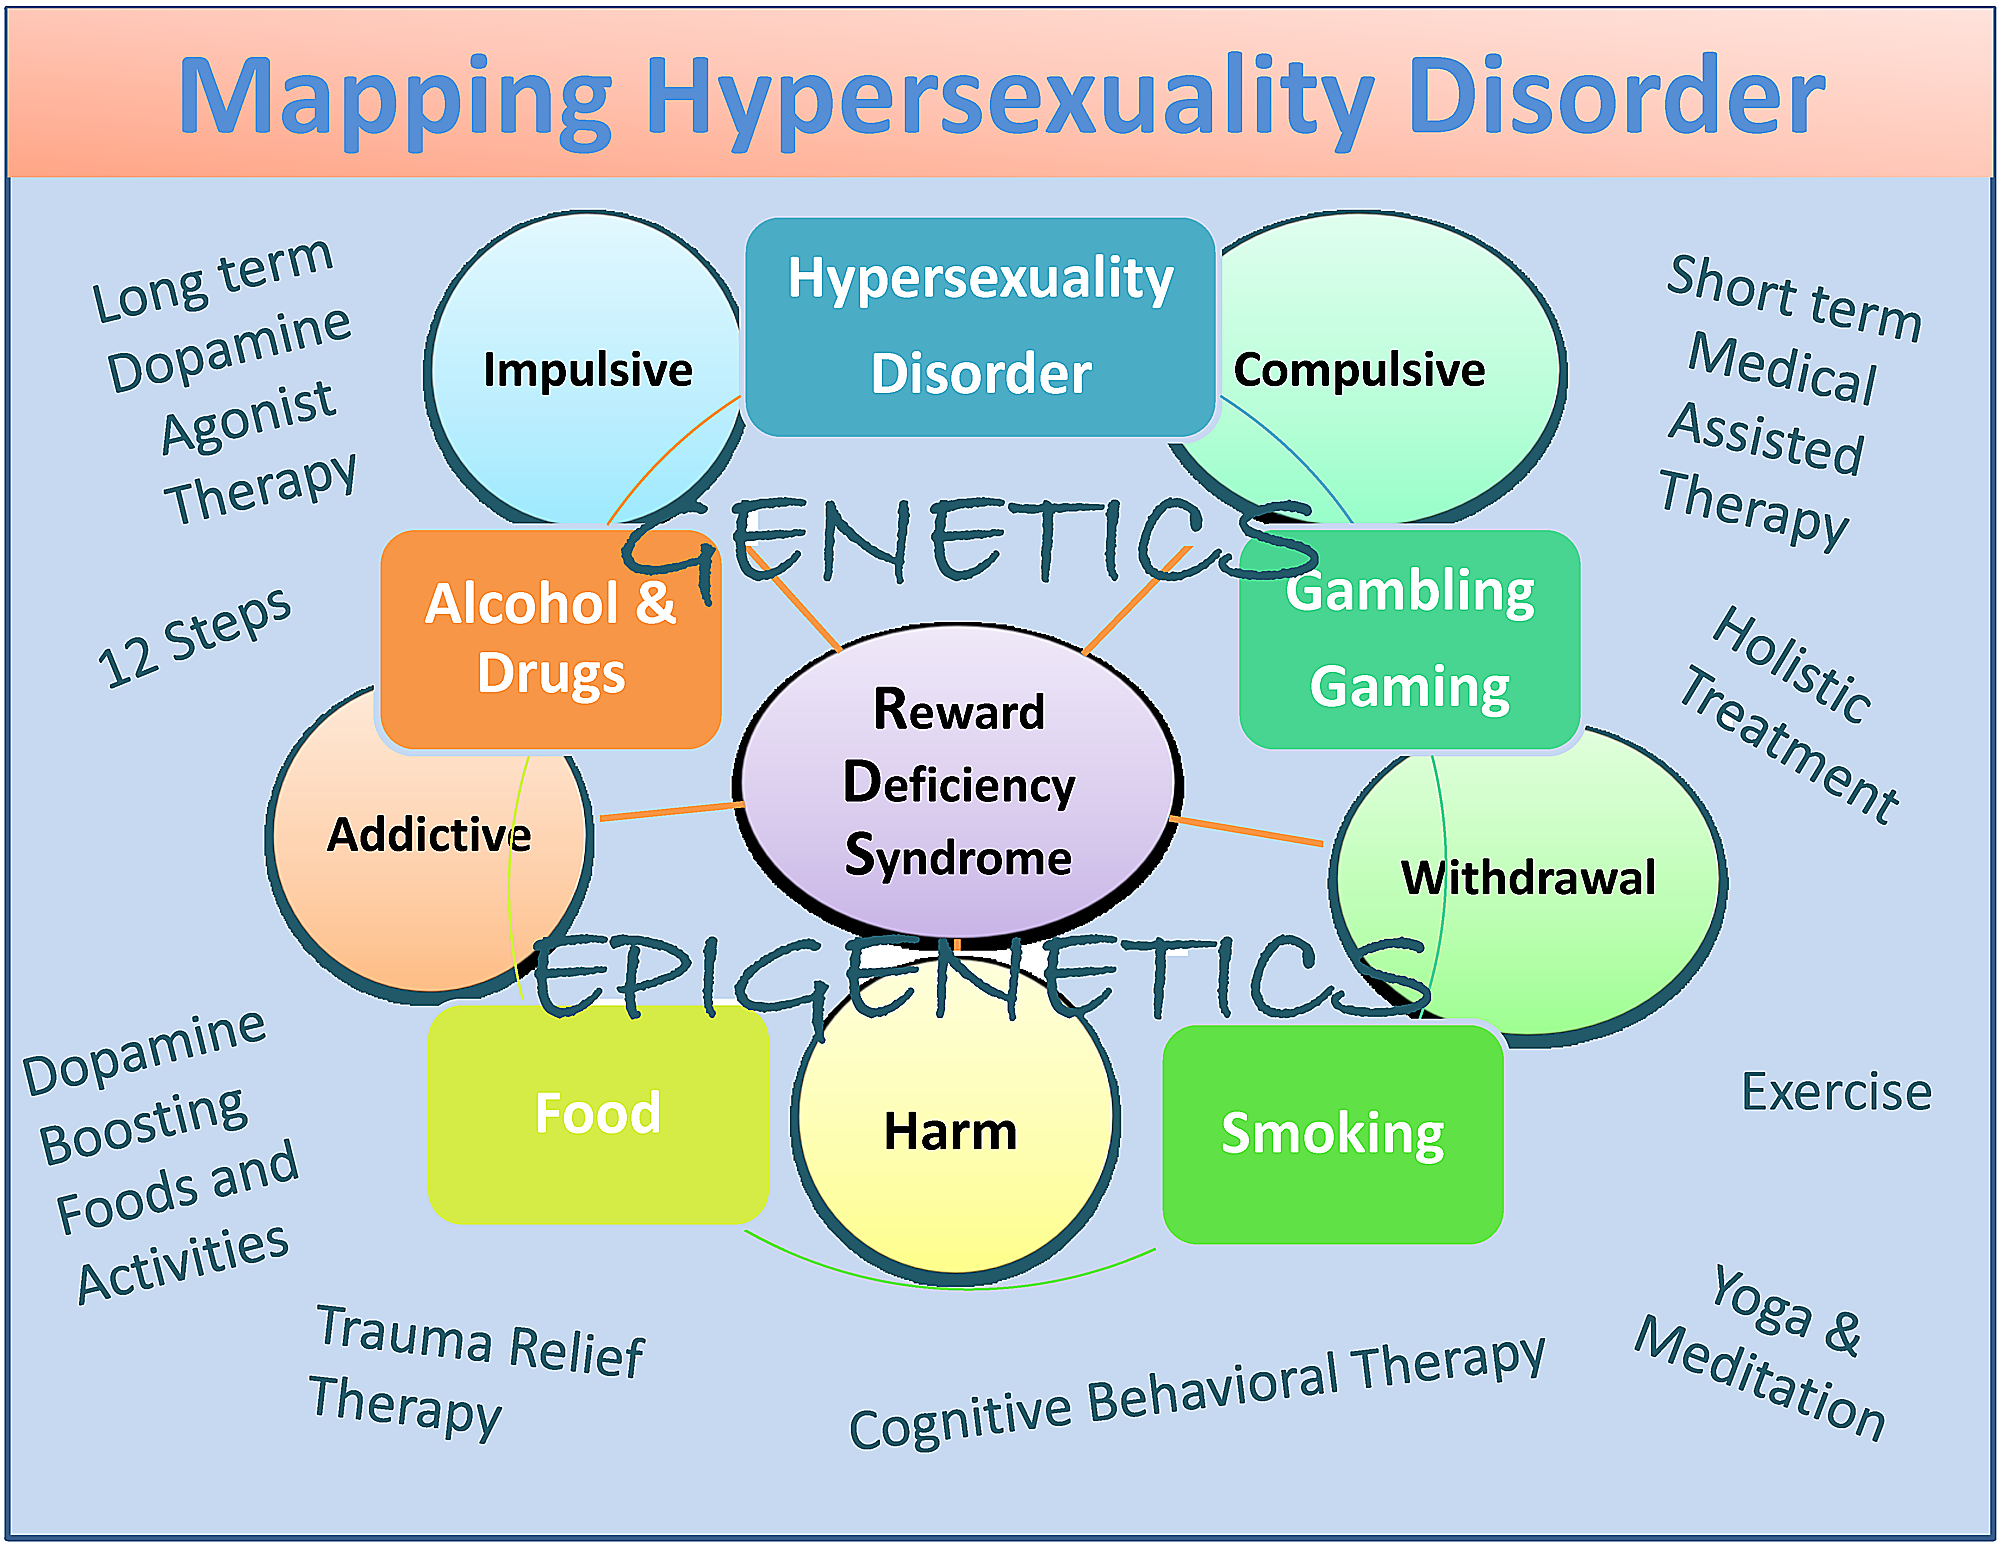
Embora haja potencial viés, eles incluem terapia agonista da dopamina - nutracêuticos (KB220), o programa e a tradição dos 12 passos, tratamento holístico, terapia cognitivo-comportamental (TCC) e terapia de alívio do trauma (TRT), bem como atividades e alimentos que aumentam a dopamina (Figura 1 ) [82].
A controvérsia
Embora acreditemos firmemente que o transtorno de hipersexualidade deva ser incluído em futuras edições do DSM, ficamos um tanto perplexos com o pouco que se sabe sobre esse transtorno em termos de neurogenética e epigenética, e até mesmo sobre a sintomatologia de abstinência e a fenomenologia geral [83] . A principal mensagem a ser transmitida é que agora incentivamos a comunidade científica a realizar experimentos, especialmente na área de neuroimagem e neurogenética, incluindo a epigenética específica de genes, como o gene da oxitocina-vasopressina-orexina-dopamina, bem como outros genes de recompensa. Possivelmente, essa condição pode se beneficiar de tratamentos que visem polimorfismos de genes de recompensa para auxiliar na promoção da homeostase da dopamina [84-89] . Diversas revisões de Joranby et al. e Edge e Gold apoiam oportunidades comuns de tratamento relacionadas a mecanismos neuroquímicos compartilhados nos circuitos de recompensa cerebral, conforme proposto anteriormente no conceito de RDS [90-91].
Historicamente, o “vício em sexo” foi incluído no DSM-III, porém, foi removido do DSM-IV porque o consenso dos autores do DSM-IV era de que não havia evidências suficientes para justificar sua inclusão. Essa decisão foi marcada por intensa emoção entre os líderes da área. Após esse evento, diversos cientistas, incluindo Kafka, Reid, Prause e outros, decidiram enquadrar a “hipersexualidade” não como um vício em sexo, mas como um transtorno mental independente e não como um vício em si. Embora seus trabalhos anteriores, de 2010, tenham sugerido, conforme mencionado aqui, que a “hipersexualidade” era semelhante ao vício em sexo e possivelmente a outros vícios, incluindo o abuso de substâncias, seus trabalhos mais recentes recuam dessa afirmação. Trabalhos recentes nessa área revelam controvérsia contínua. Há diversos estudos baseados em eletrofisiologia, realizados pelo grupo de Prause, que fornecem algumas evidências de que o desejo sexual, e não a hipersexualidade, prediz a autorregulação da excitação sexual [92] . Esses pesquisadores sugerem, em outro trabalho, que indivíduos que relataram problemas na regulação da visualização de estímulos sexuais visuais (ESV) e que também relataram maior desejo sexual apresentaram potenciais positivos tardios (PPT) mais baixos em resposta aos ESV. Os autores propõem que esse padrão parece ser diferente dos modelos de dependência de substâncias [93] . No entanto, embora não envolva indivíduos com transtorno de hipersexualidade, o trabalho do grupo de Voon mostrou que, em indivíduos com comportamento sexual compulsivo expostos a vídeos sexualmente explícitos, houve maior atividade na rede neural, semelhante à observada em estudos de reatividade a estímulos relacionados a drogas [94] . Um maior desejo ou vontade, em vez de gostar, foi ainda associado à atividade nessa rede neural. Esse trabalho se alinha com as teorias de motivação por incentivo [95].
Nós, autores do presente artigo, admitimos que não tivemos acesso a todas as interações importantes que ocorreram entre os proponentes do “Transtorno de Hipersexualidade” e sua intenção genuína de incluir esse transtorno no atual DSM-5. Embora tenha falhado no chamado “teste decisivo”, há todos os motivos para acreditar que ele será incluído em futuras edições do DSM. É importante notar que Steven Hyman, o atual diretor do NIH, argumentou corretamente que “o DSM é um reflexo inadequado das realidades clínicas e biológicas; uma abordagem fundamentalmente nova para a classificação diagnóstica é necessária à medida que os pesquisadores descobrem novas maneiras de estudar e compreender as doenças mentais” [96] . Além disso, Casey et al. propuseram que, embora o DSM considere diferentes transtornos como entidades distintas, “os limites entre os transtornos muitas vezes não são tão rígidos quanto o DSM sugere” [97].
Em 2014, Karila et al. sugeriram que o vício sexual, também conhecido como transtorno hipersexual, tem sido ignorado por alguns psiquiatras, apesar de a condição causar sérios problemas psicossociais. Segundo esses autores, eles propõem que vício sexual ou transtorno hipersexual representam termos diferentes para o mesmo problema. Eles apontam que as taxas de prevalência de transtornos relacionados ao vício sexual variam de 3% a 6%. Consequentemente, o construto de Vício Sexual/Transtorno Hipersexual apresenta comportamentos problemáticos, incluindo: masturbação excessiva, cibersexo, uso de pornografia, comportamento sexual aberrante com adultos que consentem, sexo por telefone, visitas a clubes de strip-tease e outros comportamentos aditivos [98] . Certamente concordamos que pode haver diferenças distintas entre vício sexual e hipersexualidade, como observado por Carvalho et al. [99] , Rettenberger et al. [100], Kor et al. [1] , Reid et al. [9] , Kafka e Hennen [13] e Prause et al. [93-94] entre outros.
Em resumo, propusemos que, embora existam algumas diferenças entre hipersexualidade e vício em sexo, mais pesquisas são necessárias para categorizar adequadamente essas condições muito importantes. Concordamos com o trabalho de Walters et al. [101] , que sugeriu que as diferenças individuais na hipersexualidade são de natureza quantitativa, e não qualitativa. Eles também sugerem que a hipersexualidade se organiza ao longo de um continuum, situando-se na extremidade superior desse continuum (Figura 1 ).

Figura 1: Um mapa descritivo do Transtorno da Hipersexualidade como subtipo de RDS
A figura ilustra efeitos neurogenéticos e epigenéticos interativos. São listados os bloqueios de dopamina de curto prazo e os tratamentos baseados em "homeostase dopaminérgica" de longo prazo e as terapias e atividades diárias de reforço da dopamina. Círculos indicam características RDS e caixas indicam comportamentos RDS.
Conclusões
Embora reconhecendo a controvérsia, propomos que possíveis diferenças e semelhanças entre transtorno de hipersexualidade e dependência sexual devem ser investigadas adequadamente usando neuroimagem (fMRI, PET, SPECT), optogenética, análise de candidatos e microarray e técnicas epigenéticas. Acreditamos que essas investigações fornecerão a base para a inclusão da hipersexualidade como um transtorno em edições futuras do DSM.
Referências
- Kor A, Y Fogel, Reid RC, Potenza MN: O Transtorno Hipersexual deve ser classificado como um vício?. Compulsividade Sex Addict. 2013, 20:http://www.ncbi.nlm.nih.gov/pmc/articles/PMC3836191/. 10.1080/10720162.2013.768132
- Corrida B: Consultas médicas e observações sobre a doença da mente. Rush B (ed): Edições Gryphon Ltd., Birmingham, AL; (Trabalho original publicado 1812) revisto em 1979.
- von Krafft-Ebing R: Psicopatia sexual. Klaf FS (ed): Stein e Day, Nova Iorque; (trabalho original publicado 1886) revisto em 1965.
- Hirshfeld M: Anomalias sexuais: as origens, a natureza e o tratamento dos distúrbios sexuais. Hirshfeld M (ed): Livros Emerson, Nova Iorque; 1948.
- Carrinho de passeio RJ: Perversão: a forma erótica do ódio. Pantheon Books, Nova Iorque; 1975.
- Allen CA: Um livro de transtornos psicossexuais. Oxford University Press, Londres; 1962.
- Ellis A, Sagarin E: Nymphomania: Um estudo da mulher de oversexed. Gilbert Press, Nova Iorque; 1964.
- Kafka MP: O que aconteceu com o transtorno hipersexual?. Arch Sex Behav. 2014, 43: 1259-1261. 10.1007 / s10508-014-0326-y
- Reid RC, Temko J, Moghaddam JF, Fong TW: Vergonha, ruminação e autocompaixão em homens avaliados para transtorno hipersexual. J Psychiatr Pract. 2014, 20: 260 – 268. 10.1097 / 01.pra.0000452562.98286.c5
- Bancroft J: Sexualidade Humana e seus Problemas. Terceira edição. Elsevier, Oxford, Inglaterra; 2009.
- Classificação Estatística Internacional de Doenças e Problemas Relacionados à Saúde, Revisão 10th . (2007) Acesso: julho 23, 2015: http://apps.who.int/classifications/apps/icd/icd10online2007/.
- Cantor B, Toates FM: Motivação sexual. J Sex Research. 1987, 23: 481 – 501. 10.1080/00224498709551386
- Kafka MP, Hennen J: Desejo hipersexual em homens: os homens com parafilias são diferentes dos homens com distúrbios relacionados à parafilia?. Abuso sexual. 2003, 15: 307 – 321. 10.1023 / A: 1025000227956
- Buss DM, Schmitt DP: Teoria das estratégias sexuais: uma perspectiva evolutiva sobre o acasalamento humano. Psychol Rev. 1993, 100: 204 – 232. 10.1037 / 0033-295X.100.2.204
- Corbett-Detig RB, Hartl DL e Sackton TB: A seleção natural restringe a diversidade neutra em uma ampla gama de espécies. Psychol Bull. 1995, 13: e1002112.- 469-496. doi: 10.1371 / journal.pbio.1002112
- Laumann EO, Michael RT, Gagnon JH: Uma história política da pesquisa nacional sobre sexo de adultos. Planef Perspect. 1994, 26: 34 – 38. 10.2307/2136095
- Jones JC, Barlow DH: Freqüência autorreferida de impulsos sexuais, fantasias e fantasias masturbatórias em homens e mulheres heterossexuais. Arch Sex Behav. 1990, 19: 269 – 79. 10.1007 / BF01541552
- Oliver MB, Hyde JS: Diferenças de gênero na sexualidade: uma meta-análise. Psychol Bull. 1993, 114: 29 – 51. 10.1037 / 0033-2909.114.1.29
- Okami P, Shackelford TK: Diferenças de sexo humano em psicologia sexual e comportamento. Annu Rev Sex Res. 2001, 12: 186–241. 10.1080/10532528.2001.10559798
- Leitenberg H, Detzer MJ, Srebnik D: Diferenças de gênero na masturbação e a relação da experiência da masturbação na pré-adolescência e / ou adolescência inicial com o comportamento sexual e o ajustamento sexual na idade adulta jovem. Arch Sex Behav. 1993, 22: 87 – 98. 10.1007 / BF01542359
- Fetterman AK, Kruger NN e Robinson MD: Estratégias de acasalamento ligadas ao sexo divergem com a manipulação da saliência genital. Motiv Emot. 2015, 39: 99 – 103. 10.1007/s11031-014-9420-7
- Basson R: Usando um modelo diferente para a resposta sexual feminina para lidar com o problemático baixo desejo sexual das mulheres. J Sex Marital Ther. 2001, 27: 395–403. 10.1080/713846827
- Andersen BL, Cyranowski JM e Aarestad S: Além das distinções artificiais, ligadas ao sexo, para conceituar a sexualidade feminina: comente sobre Baumeister. Psychol Bull. 2000, 126: 380 – 389. 10.1037 // 0033-2909.126.3.380
- Knight RA, Sims-Knight JE: Os antecedentes desenvolvimentais da coerção sexual contra mulheres: testando hipóteses alternativas com modelagem de equações estruturais. Ann NY Acad Sci. 2003, 989: 72 – 85. 10.1111 / j.1749-6632.2003.tb07294.x
- Blum K, Werner T, Carnes S, Carnes P, Bowirrat A, Giordano J, Oscar Berman M, Ouro M: Sexo, drogas e rock 'n' roll: hipótese de ativação mesolímbica comum como uma função de polimorfismos do gene de recompensa. J Drogas Psicoativas. 2012, 44: 38 – 55. 10.1080/02791072.2012.662112
- Carnes PJ, Green BA, Merlo LJ, Polles A, Carnes S, Gold MS: PATHOS: um breve aplicativo de triagem para avaliar o vício sexual. J Addict Med. 2012, 6: 29 – 34. 10.1097/ADM.0b013e3182251a28
- Hanson RK: O Static-99 prevê reincidência entre os ofensores sexuais mais velhos?. Abuso sexual. 2006, 18: 343–355. 10.1007 / s11194-006-9027-y
- Weinstein A, L Katz, Eberhardt H, Cohen K, Lejoyeux M: Compulsão sexual - Relação com sexo, apego e orientação sexual. J Behav. 2015, 4: 22 – 26. 10.1556 / JBA.4.2015.1.6
- Chung WS, Lim SM, Yoo JH e Yoon H: Diferença de gênero na ativação cerebral para estimulação sexual audiovisual; as mulheres e os homens experimentam o mesmo nível de excitação em resposta ao mesmo clipe de vídeo?. Int J Impot Res. 2013, 25: 138-142. 10.1038 / ijir.2012.47
- Rupp HA, Wallen K: Diferenças sexuais em resposta a estímulos sexuais visuais: uma revisão. Arch Sex Behav. 2008, 37: 206 – 218. 10.1007/s10508-007-9217-9
- Hanson RK, Harris AJ, Helmus L, Thornton D: Infratores sexuais de alto risco podem não ser de alto risco para sempre. J Interpreta Violência. 2014, 29: 2792-813. 10.1177/0886260514526062
- Reid RC, Cyders MA e Moghaddam JF Fong TW: Propriedades psicométricas da Escala de Impulsividade de Barratt em pacientes com transtornos do jogo, hipersexualidade e dependência de metanfetaminas. Addict Behav. 2014, 39: 1640 – 1645. 10.1016 / j.addbeh.2013.11.008
- Reid RC, Carpinteiro BN, Gancho JN, Garos S, Manning JC, Gilliland R, Cooper EB, McKittrick H, Davtian M, Fong T: Relatório de descobertas em um ensaio de campo do DSM-5 para transtorno hipersexual. J Sex Med. 2012, 9: 2868 – 2877. 10.1111 / j.1743-6109.2012.02936.x
- Garcia FD, Thibaut F: Vícios sexuais. Am J Drug Alcohol Abuse. 2010, 36: 254-260. 10.3109/00952990.2010.503823
- Reid RC, Bramen JE, Anderson A, Cohen MS: Mindfulness, desregulação emocional, impulsividade e propensão ao estresse entre pacientes hipersexuais. J Clin Psychol. 2014, 70: 313 – 321. 10.1002 / jclp.22027
- Titular MK, Hadjimarkou MM, SL Zup, Blutstein T, Benham RS, McCarthy MM, Mong JA: A metanfetamina facilita o comportamento sexual feminino e aumenta a ativação neuronal na amígdala medial e no núcleo ventromedial do hipotálamo. Psiconeuroendocrinologia. 2010, 35: 197 – 208. 10.1016 / j.psyneuen.2009.06.005
- Spauwen LW, Niekamp AM, Hoebe CJ, Dukers-Muijrers NH: Uso de drogas, comportamentos sexuais de risco e infecções sexualmente transmissíveis em swingers: um estudo transversal na Holanda. Sexo Transm Infect. 2015, 91: 31 – 36. 10.1136 / sextrans-2014-051626
- Castelo-Branco C, Parera N, N Mendoza, Pérez-Campos E, Lete I, Grupo CEA: Abuso de álcool e drogas e comportamentos sexuais de risco em mulheres adultas jovens. Gynecol Endocrinol. 2014, 30: 581 – 586. 10.3109/09513590.2014.910190
- Jia ZJ, Yan SY, Bao YP, Z Lian Z, Zhang HR, Liu ZM: Diferenças de comportamento sexual entre usuários de estimulantes do tipo anfetamina e usuários de heroína. J Addict Med. 2013, 7: 422 – 427. 10.1097/ADM.0b013e3182a952b2
- Bruijnzeel AW: Sinalização do receptor kappa-opióide e função de recompensa do cérebro. Res do cérebro Rev. 2009, 62: 127 – 146. 10.1016 / j.brainresrev.2009.09.008
- Orsini CA, Ginton G, KG Shimp, Avena NM, MS ouro, Setlow B: Consumo de alimentos e ganho de peso após cessação da administração crônica de anfetaminas. Apetite. 2014, 78: 76 – 80. 10.1016 / j.appet.2014.03.013
- Ibrahim C, Reynaert C: Hipersexualidade em distúrbios neurocognitivos em idosos - uma revisão abrangente da literatura e estudo de caso. Psychiatr Danub. 2014, 26: 36 – 40.
- Vallejo-Medina P, Sierra JC: Efeito do uso de drogas e influência da abstinência no funcionamento sexual de uma amostra dependente de drogas masculina espanhola: um estudo multisite. J Sex Med. 2013, 10: 333 – 341. 10.1111 / j.1743-6109.2012.02977.x
- Baskerville TA, Douglas AJ: Interações subjacentes entre dopamina e ocitocina: possíveis contribuições para distúrbios comportamentais. CNS Neurosci Ther. 2010, 16: e92-123. 10.1111 / j.1755-5949.2010.00154.x
- Riebe CJ, Lee TT, monte MN, Gorzalka BBB: Retirada precipitada contraria os efeitos adversos da administração subacrônica de canabinóides no comportamento sexual de ratos machos. Neurosci Lett. 2010, 472: 171 – 174. 10.1016 / j.neulet.2010.01.079
- Korda JB, Pfaus JG, Kellner CH, Goldstein I: Transtorno persistente da excitação genital (PGAD): relato de caso de tratamento sintomático a longo prazo com eletroconvulsoterapia. J Sex Med. 2009, 6: 2901 – 2909. 10.1111 / j.1743-6109.2009.01421.x
- Huang CJ, Liao HT, GC Yeh, Hung KL: Distribuição dos alelos HLA-DQB1 em pacientes com síndrome de Kleine-Levin. J Clin Neurosci. 2012, 19: 628 – 630. 10.1016 / j.jocn.2011.08.020
- Blum K, nobre EP, Sheridan PJ, Montgomery A, T Ritchie, Jagadeeswaran P, H Nogami, Briggs AH, Cohn JB: Associação alélica do gene do receptor D2 da dopamina humana no alcoolismo. JAMA 1990, 263: 2055 – 2060. 10.1001 / jama.263.15.2055
- Blum K, Sheridan PJ, madeira RC, Braverman ER, Chen TJ, Cull JG, Comings DE: O gene do receptor de dopamina D2 como determinante da síndrome de deficiência de recompensa. JR Soc Med. 1996, 89: 396-400. 10.1177/014107689608900711
- Miller WB, Macarrão DJ, MacMurray J, Chiu C, Wu H, Comings Genes de receptores de dopamina estão associados à idade na primeira relação sexual. J Biosoc Sci. 1999, 31: 43 – 54. 10.1017 / S0021932099000437
- Hamann S, Herman RA, Nolan CL, Wallen K: Homens e mulheres diferem na resposta da amígdala aos estímulos sexuais visuais. Nat Neurosci. 2004, 7: 411 – 416. 10.1038 / nn1208
- Quiñones-Jenab V: Por que as mulheres de Vênus e os homens de Marte abusam da cocaína?. Cérebro Res. 2006, 1126: 200 – 203. 10.1016 / j.brainres.2006.08.109
- EP nobre, Blum K, M de Khalsa, Ritchie T, Montgomery, um RC da madeira, Fitch RJ, T de Ozkaragoz, Sheridan PJ, MD de Anglin, Paredes A, Treiman LJ, Sparkes RS: Associação alélica do gene do receptor de dopamina D2 com dependência de cocaína. Álcool de Drogas Depende. 1993, 33: 271 – 285. 10.1016/0376-8716(93)90113-5
- Harrison PJ, Tunbridge EM: Catecol-O-metiltransferase (COMT): um gene que contribui para diferenças sexuais na função cerebral e para o dimorfismo sexual na predisposição para transtornos psiquiátricos. Neuropsicofarmacologia. 2008, 33: 3037 – 3045. 10.1038 / sj.npp.1301543
- Guo G, Tong Y: Idade na primeira relação sexual, genes e contexto social: evidências de gêmeos e do gene do receptor de D4 da dopamina. Demografia. 2006, 43: 747 – 769. 10.1353 / dem.2006.0029
- Bradley KC, Boulware MB, Jiang H, Doerser RW, Meisel RL, Mermelstein PG: Alterações na expressão gênica no núcleo accumbens e estriado após experiência sexual. Genes Brain Behav. 2005, 4: 31 – 44. 10.1111 / j.1601-183X.2004.00093.x
- Rao BS, Raju TR, Meti BL: Aumento da densidade numérica de sinapses na região CA3 do hipocampo e na camada molecular do córtex motor após experiência recompensadora de autoestimulação. Neurociência. 1999, 91: 799 – 803. 10.1016/S0306-4522(99)00083-4
- Heshmati M: LTP induzida pela cocaína na área tegmentar ventral: novos insights sobre o mecanismo e o curso do tempo iluminam os substratos celulares da dependência. J Neurophysiol. 2009, 101: 2735 – 2737. 10.1152 / jn.00127.2009
- Castor KM, Wright JP, Walsh Uma explicação evolutiva baseada em genes para a associação entre envolvimento criminal e número de parceiros sexuais. Biodemografia Soc Biol. 2008, 54: 47 – 55. 10.1080/19485565.2008.9989131
- Santtila P, Jern P, Westberg L, Walum H, CT Pedersen, Eriksson E, Sandnabba N: O polimorfismo do gene transportador de dopamina (DAT1) está associado à ejaculação precoce. J Sex Med. 2010, 7: 1538 – 1546. 10.1111 / j.1743-6109.2009.01696.x
- Chen TJH, Blum K, Mathews D, Fisher L, Schnautz N, Braverman Er, Schoolfield J, Downs W, SH Blum, Mengucci J, Meshkin B, Arcuri V, Bajaj A, Waite RL, Comings DE: Associação preliminar dos genes do Receptor de Dopamina D2 (DRD2) [Alelo Taq1 A1] e do Transportador de Dopamina (DAT1) [Alelo 480 pb] com comportamento patológico agressivo, um subtipo clínico da Síndrome de Deficiência de Recompensa (RDS) em adolescentes. Gene Ther Mol Biol. 2007, 1: 93-112. Acesso: julho 23, 2015: http://gtmb.org/pages/Vol11A/HTML/11._Chen_et_al,_93-102.htm.
- Burt SA, Mikolajewski AJ: Evidência preliminar de que genes candidatos específicos estão associados ao comportamento antissocial de início na adolescência. Aggress Behav. 2008, 34: 437 – 445. 10.1002 / ab.20251
- Jóźków P, Słowińska-Lisowska M, Łaczmański Ł, Mędraś M: Variantes polimórficas de genes do receptor de neurotransmissores podem afetar a função sexual em homens idosos: dados do estudo HALS. Neuroendocrinologia. 2013, 98: 51 – 59. 10.1159/000350324
- Vendas JM, DiClemente RJ, Brody GH, Philibert RA, Rose E: Interação entre o polimorfismo 5-HTTLPR e histórico de abuso no comportamento de uso de preservativo de adolescentes afro-americanas após a participação em uma intervenção de prevenção do HIV. Anterior Sci. 2014, 15: 257 – 267. 10.1007/s11121-013-0378-6
- Barrett CE, Keebaugh AC, Ahern TH, Bass CE, Terwilliger EF, Young LJ: Variação na expressão do receptor de vasopressina (Avpr1a) cria diversidade em comportamentos relacionados à monogamia em ratos da pradaria. Horm Behav. 2013, 63: 518 – 526. 10.1016 / j.yhbeh.2013.01.005
- Garcia JR, MacKillop J, Aller EL, AM Merriwether, Wilson DS, Lum JK: Associações entre a variação do gene do receptor dopamina D4 tanto com a infidelidade quanto com a promiscuidade sexual. PLoS One. 2010, 5: e14162. 10.1371 / journal.pone.0014162
- Daw J, Guo G: A influência de três genes no uso de anticoncepcionais por adolescentes, EUA 1994-2002. Popul Stud (Camb). 2011, 65: 253 – 271. 10.1080/00324728.2011.598942
- Emanuele E, N Brondino, Pesenti S, Re S, Geroldi D: Carregamento genético em estilos humanos amorosos. Neuro Endocrinol Lett. 2007, 28: 815 – 821.
- Matsuda KI: Alterações epigenéticas no promotor do gene α do receptor de estrogênio: implicações nos comportamentos sociossuus. Neurosci Frente. 2014, 8: 344. 10.3389 / fnins.2014.00344
- Arroz WR, Friberg U, Gavrilets S: Homossexualidade via desenvolvimento sexual canalizado: um protocolo de teste para um novo modelo epigenético. Bioessays 2013, 35: 764 – 770. 10.1002 / bies.201300033
- Gundersen B: A união dos pares através da epigenética. Nat Neurosci. 2013, 16: 779. 10.1038 / nn0713-779
- Wang H, Duclot F, Liu Y, Wang Z, Kabbaj M: Inibidores da histona desacetilase facilitam a formação de preferências de parceiros em ratos fêmeas da pradaria. Nat Neurosci. 2013, 16: 919 – 924. 10.1038 / nn.3420
- Zeh JA, Zeh DW: Herança materna, epigenética e a evolução da poliandria. Genetica 2008, 134: 45 – 54. 10.1007 / s10709-007-9192-z
- Addad M, Lesiau A: Extroversão, neuroticismo, julgamento imoral e comportamento criminoso. Lei do Direito. 1989, 8: 611 – 622.
- Brodie R: Vírus da Mente: A Nova Ciência do Meme. Hay House, Inc, Nova Iorque, NY; 1996, pp 66.
- Hernnstein R, Murray C: A Curva de Bell: Inteligência e Estrutura de Classe na Vida Americana. The Free Press, Nova Iorque, NY; 1994.
- Smillie LD, Cooper AJ, Proitsi P, Powell JF, Pickering AD: Variação no gene da dopamina DRD2 prediz personalidade extrovertida. Neurosci Lett. 2010, 468: 234 – 327. 10.1016 / j.neulet.2009.10.095
- Comings DE: A bomba genética O ensino superior e a tecnologia avançada aceleram a seleção de genes para transtornos de aprendizagem, TDAH, comportamentos viciosos e disruptivos?. Hope Press, Duarte CA; 1996.
- Comings DE: A Síndrome do Comportamento do Problema do Adolescente. A bomba genética O Ensino Superior e a Tecnologia Avançada Aceleram a Seleção de Genes para Transtornos do Aprendizado, TDAH, Comportamentos Viciantes e Disruptivos ?. Hope Press, Duarte CA; 1996. pp 91-94.
- Comings DE: Seleção Genética. A bomba genética O Ensino Superior e a Tecnologia Avançada Aceleram a Seleção de Genes para Transtornos do Aprendizado, TDAH, Comportamentos Viciantes e Disruptivos ?. Hope Press, Duarte CA; 1996. pp 89-90.
- Comings DE: O estudo de Berkeley. A bomba genética O Ensino Superior e a Tecnologia Avançada Aceleram a Seleção de Genes para Transtornos do Aprendizado, TDAH, Comportamentos Viciantes e Disruptivos ?. Hope Press, Duarte, Califórnia; 1996. pp 105 – 210.
- Borsten J: Livro de receitas da dieta da recuperação da praia de Malibu. Vidov Publishing Inc, Malibu, CA; 2015.
- Derbyshire KL, Grant JE: Comportamento sexual compulsivo: uma revisão da literatura. J Behav. 2015, 4: 37 – 43. 10.1556/2006.4.2015.003
- Nirenberg MJ: Síndrome de abstinência de agonista da dopamina: implicações para o cuidado do paciente. Envelhecimento de drogas. 2013, 30: 587 – 592. 10.1007 / s40266-013-0090-z
- Grant JE, Brewer JA, Potenza MN: A neurobiologia da substância e vícios comportamentais. Espectro do CNS. 2006, 11: 924 – 930.
- Sakata K, Duke SM: Ausência de expressão do BDNF através do promotor IV perturba a expressão dos genes da monoamina no córtex frontal e hipocampo. Neurociência. 2014, 260: 265 – 75. 10.1016 / j.neuroscience.2013.12.013
- Blum K, Liu Y, W Wang, Wang Y, Zhang Y, Oscar Berman M, Smolen A, Febo M, Han D, T Simpatico, Cronjé FJ, Demetrovics Z, Ouro MS: Efeitos da rsfMRI de KB220Z ™ nas vias neurais em circuitos de recompensa de viciados em heroína genotipados em abstinência. Postgrad Med. 2015, 127: 232 – 241.
- McLaughlin T, Blum K, Oscar-Berman M, Febo M, Demetrovics Z, Agan G, Fratantonio J, Gold MS: Usando o Neuroadaptagen KB200z ™ para melhorar pesadelos lúcidos e aterrorizantes em pacientes com SDR: o papel da conectividade funcional reforçada, do cérebro e da homeostase dopaminérgica. J Reward Defic Syndr. 2015, 1: 24-35. 10.17756 / jrds.2015-006
- Blum K, Thanos PK, RD Badgaiyan, Febo M, Oscar-Berman M, Fratantonio J, Demotrovico Z, Ouro MS: Neurogenética e terapia genética para a síndrome da deficiência de recompensa: vamos à Terra Prometida?. Expert Opin Biol Ther. 2015, 5: 973 – 985. 10.1517/14712598.2015.1045871
- Joranby L, Pineda-Frost KY, Ouro MS: Dependência de alimentos e sistemas de recompensa do cérebro. Dependência sexual e compulsividade. 2005, 12: 201–217. 10.1080/10720160500203765
- Edge PJ, Gold MS: Retirada de medicamentos e hiperfagia: lições do tabaco e outras drogas. Curr Pharm Des. 2011, 17: 1173 – 1179. 10.2174/138161211795656738
- Moholy M, Prause N, Proudfit, GH, Rahman A, Fong T: Desejo sexual, não hipersexualidade, prevê a auto-regulação da excitação sexual. Cogn Emot. 2015, 6: 1012.
- Prause N, Steele, VR, Staley C, Sabatinelli, D, Hajcak G: Modulação de potenciais positivos tardios por imagens sexuais em usuários problemáticos e controles inconsistentes com o "vício em pornografia". Biol Psychol. 2015, 109: 192-199. 10.1016 / j.biopsycho.2015.06.005
- Mechelmans DJ, Irvine M, Banca P, e outros: Tendência de atenção aprimorada para pistas sexualmente explícitas em indivíduos com e sem comportamentos sexuais compulsivos. PLoS One. 2014, 25, 9 (8): e105476. 10.1371 / journal.pone.0105476
- Blum K, Gardner E, Oscar Berman M, Ouro M: “Gostar” e “querer” ligados à síndrome de deficiência de recompensa (RDS): hipotetizando a responsividade diferencial nos circuitos de recompensa do cérebro. Curr Pharm Des. 2012, 18 (1): 113-118.
- Hyman SE: Diagnosticando o DSM: Necessidades de Classificação de Diagnóstico Reforma Fundamental. Cérebro. 2011, 2011: 6. Acesso: 2011 Apr 26: http://www.ncbi.nlm.nih.gov/pmc/articles/PMC3574782/.
- Casey BJ, Craddock N., Cuthbert BN, SE Hyman, Lee FS, Ressler KJ: DSM-5 e RDoC: progresso na pesquisa em psiquiatria?. Nat Rev Neurosci. 2013, 14: 810-14. 10.1038 / nrn3621
- Karila L, Wéry A, Weinstein A, Cottencin O, Petit A, Reynaud M., Billieux J: Vício sexual ou transtorno hipersexual: termos diferentes para o mesmo problema? Uma revisão da literatura. Curr Pharm Des. 2014, 20: 4012-20. 10.2174/13816128113199990619
- Carvalho J, Štulhofer A, Vieira AL e Jurin T: Hipersexualidade e alto desejo sexual: explorando a estrutura da sexualidade problemática. J Sex Med. 2015, 12: 1356-67. Acesso: 2015 Mar 23: http://onlinelibrary.wiley.com/doi/10.1111/jsm.12865/abstract;jsessionid=6F416CCBB66B7F0EA28E428D4993EBD5.f01t04. 10.1111 / jsm.12865
- Rettenberger M, Klein V, Briken P: A relação entre o comportamento hipersexual, a excitação sexual, a inibição sexual e os traços de personalidade. Arch Sex Behav. 2015, Jan 6: (Epub antes da impressão). Acessado: 2015 Jan 6: 10.1007/s10508-014-0399-7
- Walters GD, Cavaleiro RA, Långström N: A hipersexualidade é dimensional? Evidência para o DSM-5 da população geral e amostras clínicas. Arch Sex Behav. 2011, 40: 1309-21. Acessado: 2011 Feb 3: 10.1007/s10508-010-9719-8